歴史生物学 TCA回路への異論 9

 だが、話は「歴史生物学 TCA回路への異論 8」で終わらすことはできない。こんなブログを読んでいる人であれば当然ご存知だと思うが、KEGG(Kyoto Encyclopedia of Genes and Genomes)というデータベースは、膨大な情報を集積しているだけでなく、使いやすい形で提供しているサイトである。(近頃アップグレードがなされ私にとっては幾分使い難くなった。でも不平は言えない。)個人ユーザーとして、寝る前のかなりな時間をこのサイトで遊んでいる。これほどの情報にアクセスできるなど、若い頃には想像できなかった。サイトを構築された金久實教授とそのスタッフに、どれほど感謝してもしすぎることはないと思っている。そんな私が、真核生物(動物: 85種、植物: 38種、Fungi: 72種、Protist: 41種)、原核生物(真性細菌: 2594種、古細菌:165種)の計2995種の生物について、どのような TCA 回路を持つかを調べてみた。最終的に一月ほどかかったのだが、視力が落ちて、肩が凝った。マッサージに行くはめになっただけでなく、自らの無知を再確認させられるような被虐的楽しみの毎日であった。

 原核生物に我々のものとは異なるTCA回路を持つ生物がいることは知ってはいた。だが、真核生物の中にも、そうした生物がいたのである。アピコンプレックス門に属する原虫類、マラリア原虫に代表されるグループの TCA 回路は左回りの系で、2-ケトグルタル酸までで止まっている。もっともこのグループは寄生性の原虫であるから、系が不完全でも良いではないかという議論が成立するとして無視するのは可能だろう。だが、そういうわけにも行かないようだ。例えばXenopus laevis(アフリカツメガエル)、実験動物として広く使われ切り刻まれている気の毒なカエルだが、このカエルに於いてはフマル酸とリンゴ酸の間が切れている。Micromonas sp. RCC299は海洋性ピコプランクトンとして知られている緑藻の仲間だが、この藻に於いてはクエン酸から2-ケトグルタル酸をつなぐ酵素が存在しない。珪藻の中にも同じ欠損を持つ種が存在する。ということから、少し丹念に調べてみることにした。

 真性細菌、いわゆるバクテリアや古細菌を片っ端からみていくと、回路になっていないTCA回路(この表現は矛盾している)を持つ種は珍しいものではなく、かなりな割合の種が存在している。最初はそれほど多数にはならないと楽観していたのだが、余りの多さに驚いてしまった。この部分をきちんと割合で示す事ができればいいのだが、さすがに再度見直す気分にはなれない。ただ、TCA 回路の空白部分は、幾つかのパターンに分けられそうである。同時に、当然ではあるが寄生性の生物においては不完全な回路を持つものが多いようだ。

 前置きはこれくらいにして、幾つかの欠損パターンを持つTCA(非)回路を示してみよう。図3-23にPseudomonas aeruginosaの持つTCA(非)回路を示す。
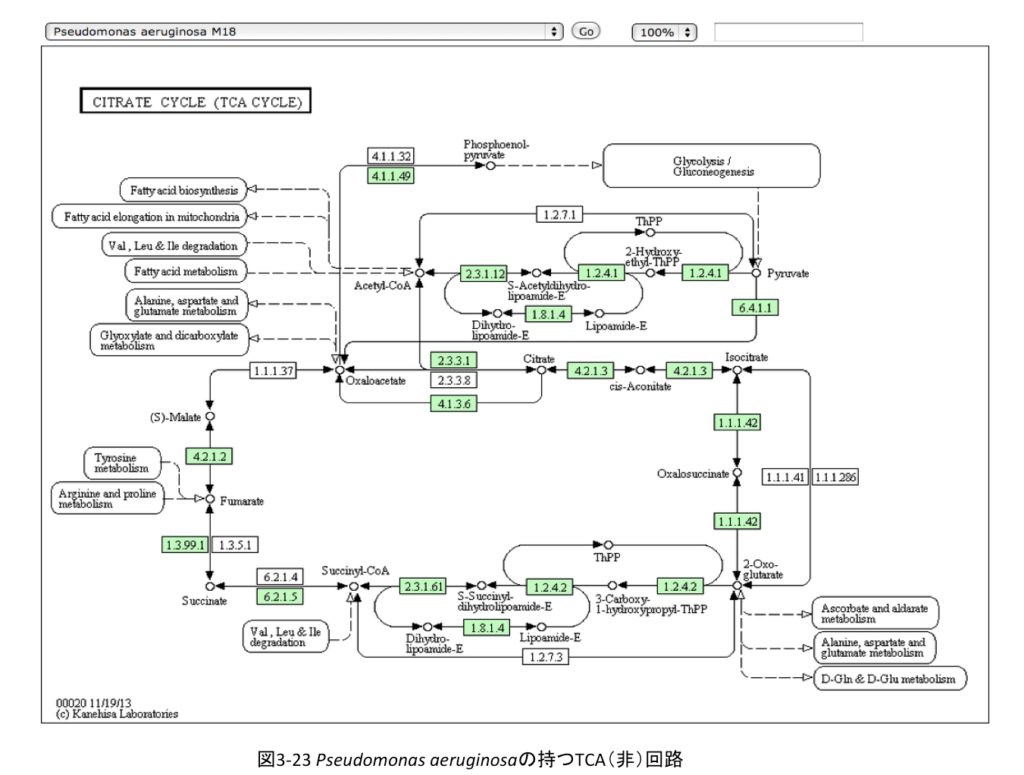
 こうしてみるとリンゴ酸とオギザロ酢酸の間で切れているように見えるが、このタイプの系路を持つ生物には、ピルビン酸とリンゴ酸をつなぐ系が存在するため、系のメンバーとしてピルビン酸を加えれば回路が成立する。Pseudomonas の中では、Pseudomonas mendocina、Pseudomonas syringae、 Pseudomonas stutzeriがこの系を持つだけでなく、Staphylococcus aureusやDesulfosporosinus orientis、Marinobacter aquaeolei、Thiomicrospira crunogena、Allochromatium vinosum、Marinomonas mediterranea、Neisseria meningitidisなどかなりな数の微生物がこの系路を持つ。従って、このグループは修飾された TCA 回路を持つものと見て良いだろう。但し、それぞれの生物が持つ回路がどちらを向いて機能しているかについては確認していない。好気性の微生物においては右回りに機能していると予想しているが、この点は今後の課題になるだろう。

 面白いのは図3-24に示すMethanothermococcus やMethanocaldococcus属細菌の持つTCA(半)回路である。
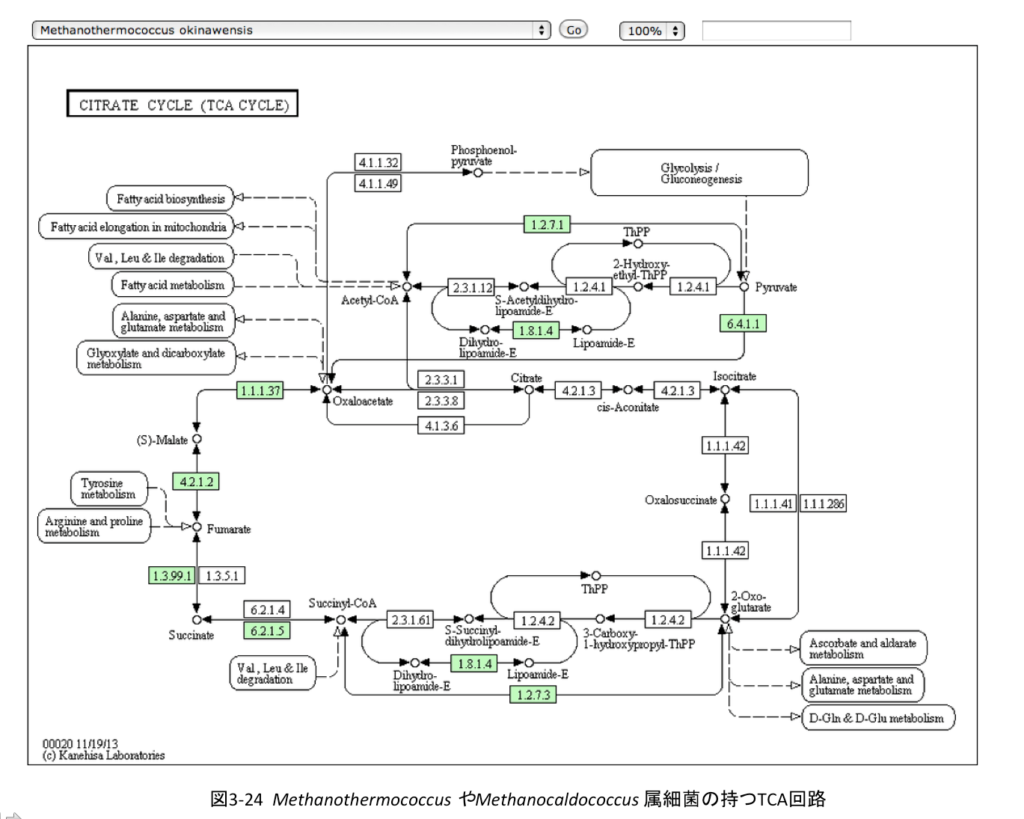
 この古細菌において、系は左回りに駆動しオギザロ酢酸からα-ケトグルタル酸に到達する。そして右半分は存在しない。この左半回路を持つ生物は古細菌だけではない。真性細菌であるChlamydia、Chlamydophil、Bifidobacterium、Desulfotomaculum、Prevotella属細菌も、同じようにオギザロ酢酸からα-ケトグルタル酸までの左回りの代謝を行う。左回りに半分しか存在しないのに回路という表現は不適切だとは思い、左半回路という表現を用いた。

  一方、図3-25に示すように、TCA回路の左半分を欠いている右回りの系を持つ生物も種々存在する。

 Eubacterium、Roseburia、Coprococcus、 Ruminococcus 属細菌などである。彼らはオギザロ酢酸から右周りに系を駆動し、2-ケトグルタル酸まで代謝を行う。アセチルCoAの生合成系がないではないかと思われる方がいると思うが、これらの生物においては Acetyl-CoA:formate C-acetyltransferaseという酵素が、ピルビン酸とアセチルCoAの間をつないでいる。Synechococcus、Brachyspira、Prochlorococcus 属細菌もほぼ同じ右半回路系持つ。

 これら以外に、上記の系路が1段階あるいは2段階延伸した系を持つ細菌、脈絡を考えにくいようなランダムな系を持つ細菌、TCA回路をかけらも持たない細菌などもいる。脈絡を考えにくいようなランダムな系を持つ細菌、TCA回路をかけらも持たない細菌類は、寄生あるいは共生という生活様式を持つものがほとんどを占め、ホストあるいは共生の相手にこの部分を依存していると思われる生物群である。(共生と寄生を明確に区別するのは極めて難しいが、ここでは常識的な用語として使っている。)

 上に述べた現実を基盤としてTCA回路の意義を考える場合、TCA回路はエネルギー(ATP)生産系などという説明はもはや意味をなさない。意義については、幾分強引な推論だが、いわゆる解糖系と還元的カルボン酸サイクルに加えて、図3-24と図3-25の系について考えれば良さそうだ。これらの4種の回路・非回路を持つそれぞれの生物群において、それぞれの系は同じ目的で駆動されていると考えて良いだろう。幾つかの異なる代謝系が同じ目的を持って駆動している場合、まず各集団に共通するものを探すのが鉄則である。この場合、4つの系で共通している化合物は 2-ケトグルタル酸である。この化合物、団塊の世代としては α-ケトグルタル酸と呼びたい化合物であり、文中でも α-ケトグルタル酸と書いてしまった部分があるようだ。

 どうやら、解糖系と還元的カルボン酸サイクル、右回りと左回りの半回路において、共通する構成成分は α-ケトグルタル酸であると考えて良さそうだ。ではこの α-ケトグルタル酸、生物の中でどのような意義を持つのか。多くの方がご存知の通り、α-ケトグルタル酸からはアミノ酸代謝が出発する。α-ケトグルタル酸のα-位のカルボニル基にアミノ基転移が起こりL-グルタミン酸、L-グルタミン酸の γ 位のカルボキシル基がアミド化されてL-グルタミンがつくられた後、これらが種々の α-ケト酸にアミノ基を転移して、多様なアミノ酸類の生合成が起こる。アミノ酸生合成は、生物がタンパク質をつくる前段階の欠くべからざる反応であり、「その出発物質であるL-グルタミンとL-グルタミンの原料である α-ケトグルタル酸を供給するのがTCA(非)回路の意義である」とするのが適切な判断だと思うが、諸氏の考えはどうだろう。

 重要な補足である。α-ケトグルタル酸から誘導されたL-グルタミン酸とL-グルタミンの存在意義は、先に述べたアミノ酸生合成の出発点にあるだけではない。両化合物は、図3-26に示すようにプリン代謝につながりDNAとRNAの原料であるアデニン、グアニンの生合成につながるのみならず、ピルビン酸の脱炭酸段階で必要なチアミンリン酸生合成へと伸びている。
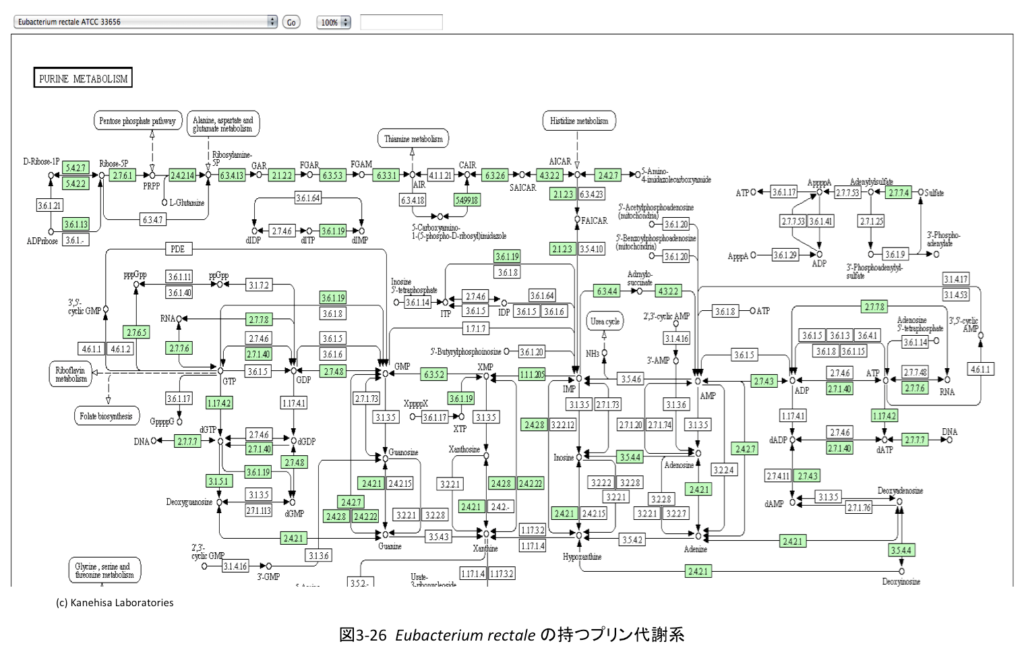
 また両化合物は図3-27に示すとおりピリミジン生合成の原料ともなりながらDNAとRNAの原料であるチミン、ウラシル、シトシンへの生合成を可能にしている。

 回路になっていないTCA回路を持つ多くの生物が存在している。酸化的リン酸化の系を持たないClostridium 属のような偏性嫌気性細菌にも、α-ケトグルタル酸で止まる右回りのTCA回路を持つものが存在する、もちろん左回りの系を持つ偏性嫌気性菌も存在する、右回りの系と左回りの系の共通代謝物はα-ケトグルタル酸である、α-ケトグルタル酸は種々のアミノ酸代謝のハブに位置する化合物である、α-ケトグルタル酸はプリン塩基とピリミジン塩基生合成の共通の原料である、という事実を重ね合わせてこの系の意義を推測するとすれば、第一義的にはα-ケトグルタル酸の供給という側面を見なければならない。エネルギー獲得系という意義付けは、酸化的リン酸化の能力を持つPseudomonas denitrificansのような好気的微生物や、Pseudomonas denitrificansの末裔ともいわれるミトコンドリアを持つ生物において成立するにすぎないだろう。但し、これらの生物においても、α-ケトグルタル酸の供給という系の意義は不変である。

 そうすると、TCA回路・還元的カルボン酸サイクル・不完全なTCA回路に通底する根源的意義は、α-ケトグルタル酸の供給に求めざるを得ない。「生物の発生以来、右回りであろうと左回りであろうと、TCA 関連系路は α-ケトグルタル酸の供給を続けてきた。その後、酸化的リン酸化能力を獲得した生物が、系を右向きに回すことで生成するNADH2やFADH2を酸化し、多量のATP生産能力を獲得した。しかし、これらの生物においてもα-ケトグルタル酸の供給の意義は継続している」と記述すべきではないだろうか。

 ギリシャ神話においてカイロスは両足に翼を持つ形で表されるが、私の想像(妄想)にも大きな翼が付いているようだ。時として、勇み足となる場合もあるだろう。しかし、結果を見た後で理屈をこねる経済学者のようにはなりたくない。夕暮れに飛び立つミネルバのフクロウにはなりたくないのである。そう思ってここまで来たのだが、1つ間違うとイカロスになる運命が待っているかもしれない。まあそれでも良い、クロノス時間に従っていても楽しくない。私の妄想はカイロスの時間に相性が良さそうだ。

歴史生物学 TCA回路への異論 完

 しばらく、PowerPoint が昔つくったファイルを開けなくなっていた。古いPCを使っているため、色々と不都合が起こり始めている。新しいマシンを入れようかなと思わないわけではないのだが、マシン代に加えて、日本語入力ソフト、年賀状作成ソフト、ChemDrawあるいはChemOfficeなど、新たに購おうとすれば40万円、あるいはそれ以上の出費を覚悟せざるを得ない。一寸以上に躊躇する。身の程を考え、生活を質素なものにして、想像と妄想と創造の世界を豊かにしていく方が実りあるものになりそうな気がしている。
 

カテゴリー: TCA回路への異論, 歴史生物学 | 歴史生物学 TCA回路への異論 9 はコメントを受け付けていません

演繹の射程

 寒い日が続いている。室温は同じでも、寒い日の方がより寒く感じるのは何故だろうなどと考えながら、自堕落に暮らしているのである。本来怠け者なので通常進行といえばそれで済むのだが、仕事は山積している。外で何か始めるとすぐにやって来て見張りをするジョウビタキが、窓のすぐ側までやって来て中をのぞいている。外に出て働けといわれているような気がしないでもないが、薪ストーブの前でうつらうつらと過ごす退職後の生活も捨て難い。この寒波が終わったら、分けてもらった30トンほどの梨の木の、運搬と薪作りをする予定である。2年乾かして再来年の冬に焚くのだから気の長い話である。その頃まで生きとるかどうかわからんぞと茶々がはいる。あんたが柿の苗木を植えるのよりまだましやと答える。そうだ、山の栗の木が、ゴマダラカミキリとシロスジカミキリの食害でほぼ全滅に近い。寒い間に新しい苗木を植えねばならない。栗なら長くて3年、大苗を植えれば2年で収穫できる。何とか間に合うか?そういえば桑の木も、ゴマダラカミキリとクワカミキリに新芽を食われ続けている。適用のある農薬がないので丁寧に剪定して除いているのだが、手間のかかること半端ではない。

 さて、TCA回路についてちまちまと書いているのだが、一つ一つの事項に対する確認がいよいよ難しくなってきた。サイエンスに基づいて書こうとしているのだが、いっそのことファンタジーとして書いたほうが楽かなと思うこともある。持っている専門書が古くなったし、新しい報告へのアクセスも不便である。九大の図書館が使えればいいのだが、片道の交通費で3,000円以上かかるだけでなく、丸一日が潰れてしまう。さらに次の日にも疲れが残るとなれば、一寸行ってこようという気にははならない。まあ可能なだけ書き続けるという楽な姿勢で向かうことにしよう。

 そこで次回の予告編になるのだが、アブシジン酸とルヌラリン酸の場合と同じような推論を行ったわけである。《アブシジン酸の総合的理解に向けて》の中で、植物の進化においてルヌラリン酸の植物中でのニッチをアブシジン酸が簒奪したという仮定の下で論を進めた。つまり、アブシジン酸が植物の生長を抑制する(好ましくない環境下において一時生長を止める)という機能をルヌラリン酸から引き継いだという立論からはじめた。TCA回路についての議論においても、逆のベクトルを持つ二つの回路において、より古いと推定される還元的カルボン酸サイクルの持っていた欠くべからざる機能を、好気的TCA回路が継承したと考えたわけである。先に述べたように、エネルギーの生産(ATPの生産)を、この「何らかの機能」として措定することは難しいと考えた。では、いわゆる好気的TCA回路は還元的カルボン酸サイクルから何を継承したのだろう。

 などなどと考えながら、人とは各自の持つ幾つかの思考様式に縛られているものだと少なからず呆れている。私の場合、幾つかの系路を比較する場合、まずそれぞれの系路の成立年代を考える。次に若かった頃に影響を受けた構造主義ー特に分節という概念ーと、カールマンハイムの知識社会学ー知識の「存在被拘束性(Seinsverbundenheit)」ーという二つの考え方を、対象とする代謝系の分析に適用する。今回もその域から一歩もでていないようだ。とはいえ、解糖系の存在意義についての解釈が今までとは全く違った解釈になっている点においてはある程度満足している。そして、この解釈の演繹可能性に期待しているのである。

 さてもう一度、桑の剪定枝の片づけに行くことにしよう。

カテゴリー: TCA回路への異論, 雑念雑話 | 演繹の射程 はコメントを受け付けていません

歴史生物学 TCA回路への異論 8

 歴史的な視座から眺めると色々な疑問が残っている。TCA 回路は、いつ地球上に現れたのだろう?初めて出現したTCA回路は、現在の系路と同じものであっただろうか?それとも、不完全な系であったのだろうか? TCA 回路が好気条件下で働く系路であるならば、嫌気的条件下で生きる生物にはTCA回路は存在するのだろうか、それとも存在しないのであろうか?前回の終わりにそう書いた。

 こうした形の疑問を持つ学生は極く少数ではあるが存在する。私もそうだった。彼らは完全な形での答えを求めているのではなく、ただ素朴に疑問を出しているに過ぎない。教える側が、そこは私にも分からないと素直に答えれば、ああ先生にもわからないことがあるんだと悪気の欠片もなく喜び、その先生を軽蔑するのではなく尊敬し始める場合があるのである。そして、これを契機に学問を始める学生もいる。

 ここで先生方が面子と沽券に囚われると学生との信頼関係が失われ、取り返しのつかないことになる。今になってわかるのだが、先生という人々が教科書を使って教えることなど大した事ではない。社会に出てさほど役立つ物ではないし、新しいといえる内容でもない。役立つとすれば、前に進もうとする師の後ろ姿くらいかな。学生(弟子)には、師を視界の先に在るものを理解しそれを超えようと汗する態度が求められる。この際、師はそうしたことができる弟子を嫉んではならない。

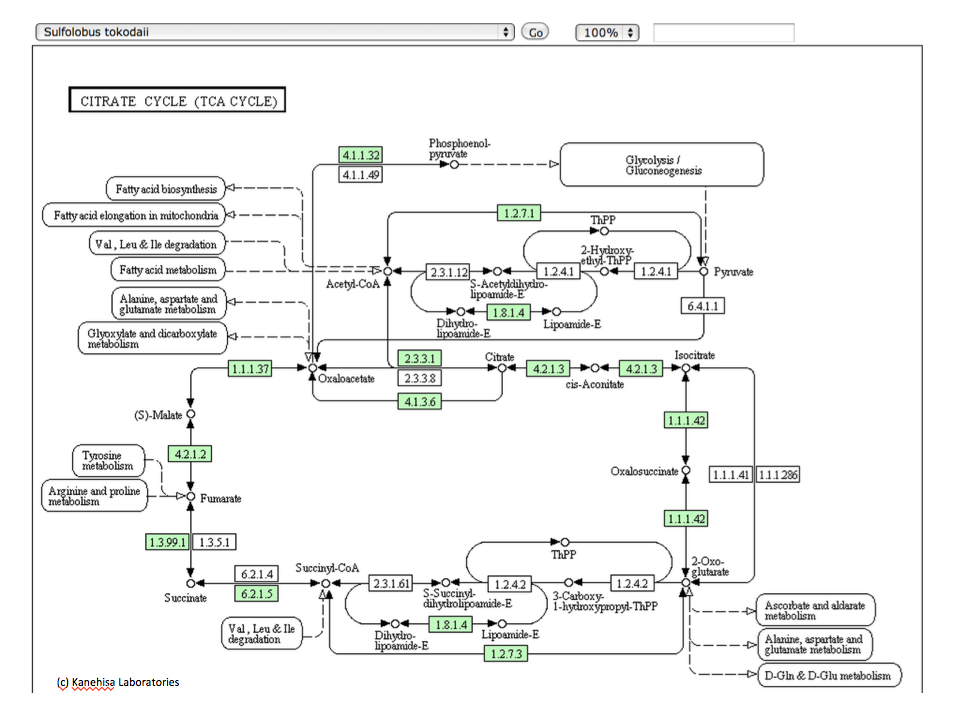
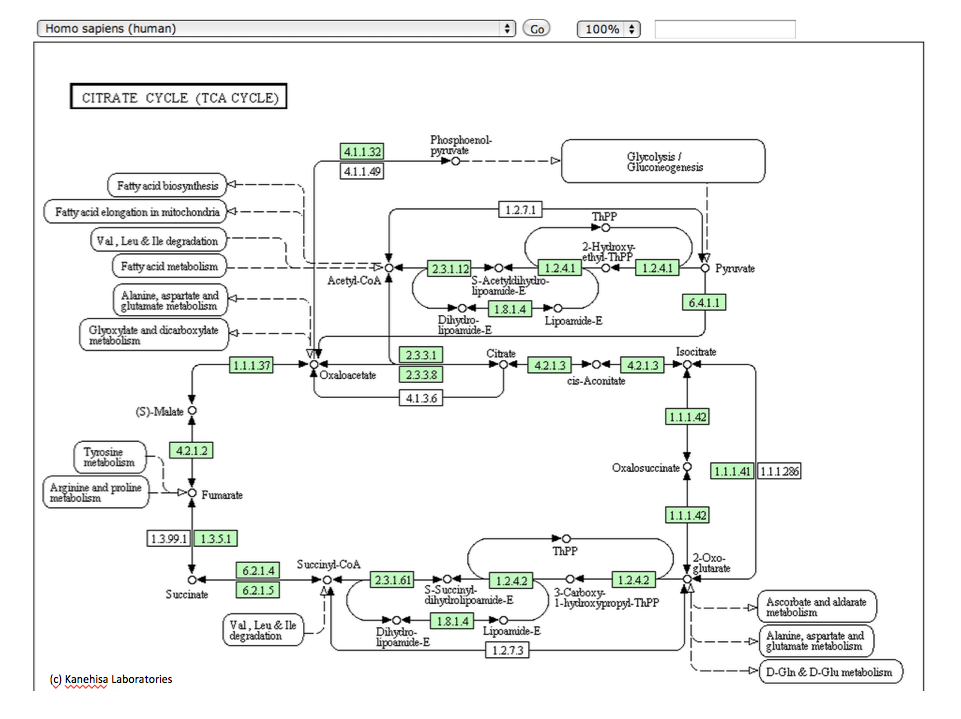
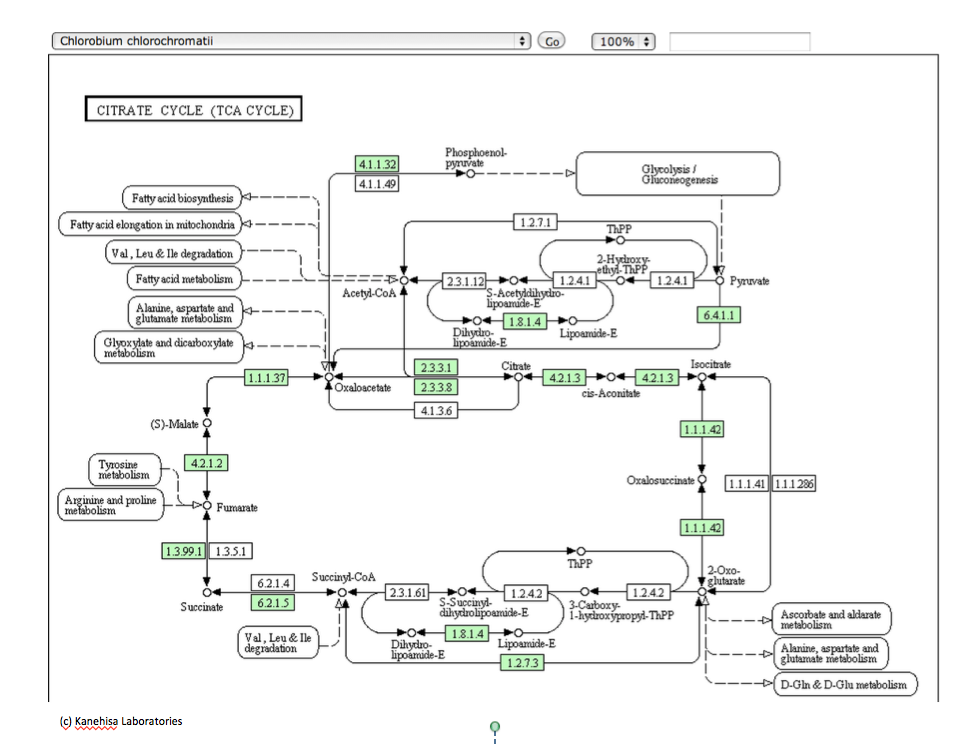
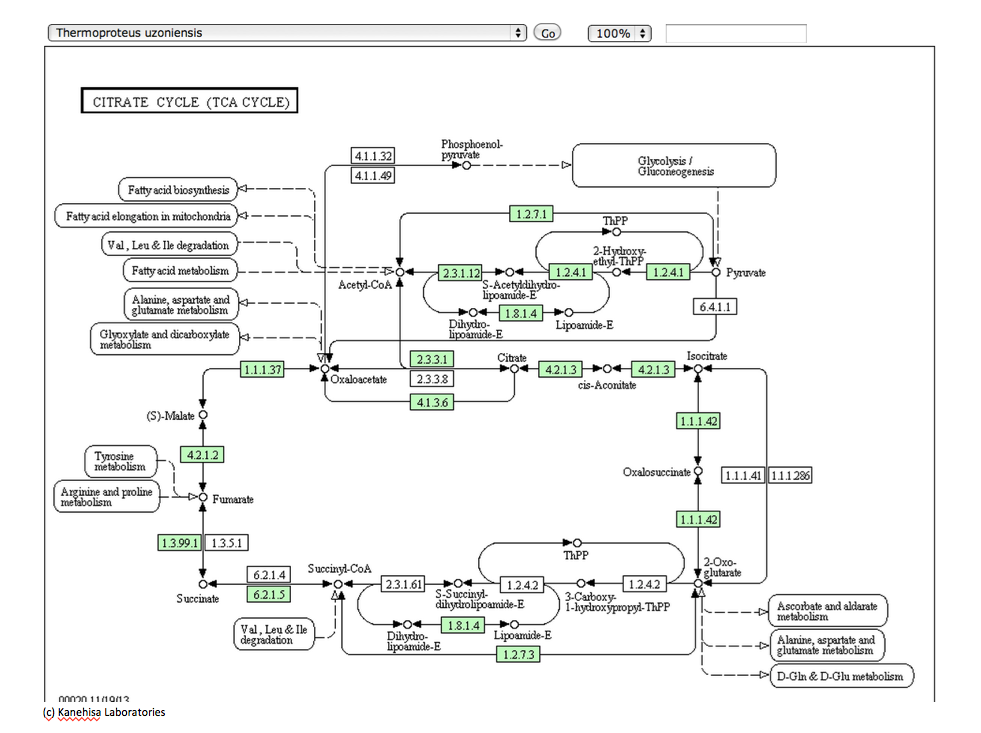
 さて本論に戻るとして、以下に示すこれらの図は、いつものようにKEGGのサイトからの引用である。図3-16は光合成細菌であるChlorobium chlorochromatiiの持つ 回路、図3-17は嫌気性古細菌であるThermoproteus uzoniensisの持つ 回路、図3−18は好気性古細菌であるSulfolobus tokodaiiの持つ回路、そして図3−19がHomo sapiens (Human) 持つ TCA回路と呼ばれる系路である。系を動かす酵素にいくつかの差異はあるにしても、系を構成する化合物は同じであり、註釈なしにこれらの図を見せられて、ヒトの持つ系路とヒト以外の生物が持つ系路が同じ存在意義を持つものではないと主張する人がいるとしたら、その人はかなりな変人だと認定されても仕方ない。私も、長い間同じように見えていた。

図3-16 光合成細菌であるChlorobium chlorochromatiiの持つ 回路
図3-17 嫌気性古細菌であるThermoproteus uzoniensisの持つ 回路
図3-18 好気性古細菌であるSulfolobus tokodaiiの持つ回路
図3-19 Homo sapiens (Human) 持つ 回路

 とはいうものの、答えるのが甚だ難しい困った事実が存在する。ヒトを除く上記の3種の生物において、その TCA 回路は右回りに機能しているのではなく左回りに機能しているのである。では、その左回りの系は何をしているのか。図3−2を参照すればすぐに分かることだが、TCA 回路が左回りに機能するとすれば、スクシニルCoA から2-Oxoglutarate、2-Oxoglutarateからオギザロコハク酸の段階で炭素固定が起こっているのである。ある程度以上の知識を持つ人々はこの系を知っており、この逆周りの系を還元的クエン酸サイクルと呼んでいる。解糖系という糖の分解系に、糖新生系という逆向きのベクトルを持つ代謝系が存在したように、TCA 回路にも還元的クエン酸サイクルという逆向きのベクトルを持つ代謝系が併存しているのである。ではこの還元的クエン酸サイクルという逆向きのベクトルを持つ代謝系は何をしているのか。

 日本光合成学会が2015年4月に公開したWeb版の光合成事典というサイトがある。その中から還元的クエン酸サイクルという逆向きのベクトルを持つ代謝系についての説明を引用したい。以下 引用である。(https://photosyn.jp/pwiki/index.php?還元的TCA回路)

 「 還元的カルボン酸回路,逆転クレブス回路とも呼ばれる炭素同化回路. Evansら(1966)により緑色硫黄細菌Chlorobium limicolaにおいて光合成CO2同化系として存在が提唱され,その後一部の紅色細菌,好熱性水素細菌Hydrogenobacter,嫌気性古細菌Thermoprotenusなどでも存在が報告されている.その起源は還元的ペントースリン酸回路より古いと考えられている.解糖系の一部とTCA回路を組み合わせたような回路で,還元型フェレドキシンを用いるピルビン酸シンターゼによりTCA回路に向かう反応とは逆にアセチルCoAからのピルビン酸合成を行う.緑色硫黄細菌ではPEPカルボキシラーゼによりホスホエノールピルビン酸(PEP)にCO2を固定しオキサロ酢酸を生成する経路が働いている.緑色硫黄細菌ではピルビン酸からホスホエノールピルビン酸への転換をピルビン酸・リン酸ジキナーゼが触媒する.オキサロ酢酸以降はTCA回路の逆転によってスクシニルCoAを生じ, TCA回路では非可逆的な反応であるスクシニルCoAから2-オキソグルタル酸(α-ケトグルタル酸)の合成を還元剤として還元型フェレドキシンを用いる2-オキソグルタル酸シンターゼにより行う.クエン酸の開裂にはATP依存型のクエン酸リアーゼを用いてオキサロ酢酸およびアセチルCoAを生成する.」

 TCA回路の説明においては、酸化的リン酸化を含めてエネルギー収支の問題が大きく取り上げられるのに、ここにはエネルギー収支の話は全く見当たらない。何となく不満である。最初にさらっと触れられたように、還元的カルボン酸回路の意義は炭素固定ということで納得して良いのだろうか。

 さらにこの逆向きのベクトルを持つ代謝系を持つ生物種の構成を考えると、現在の動物細胞もその細胞質に還元的クエン酸サイクルを持っていたように思える。それが酸化的リン酸化を伴うTCA回路を持ちミトコンドリアの祖先であった好気的細菌との共生の後、還元的クエン酸サイクルを失っていったと考えて良いだろう。つまり好気的なTCA回路が還元的クエン酸サイクルに置き換わった事を意味する。では、好気的なTCA回路は還元的クエン酸サイクルのどの機能を代替したのだろう。還元的クエン酸サイクルがエネルギー生産を行わない以上、エネルギー生産をその意義として置くことはできない、同時に好気的なTCA回路のあるかどうかわからない程度の炭素固定能力にその因を求めるのは、論理的に通用しないようだ。

カテゴリー: TCA回路への異論, 歴史生物学 | 歴史生物学 TCA回路への異論 8 はコメントを受け付けていません

インバウンドは嫌いだ

  数日前、外国からの観光客がだいぶ戻ってきたと云う新聞記事があった。小さな記事だったのだが、この現象を好意的に受け止める内容であった。もっと客が戻れば良い、もっと土産物が売れれば良い、もっと客が泊まれば良い、そうすれば地域経済が浮揚する、ひいては日本経済にも良い影響がある、そんな内容である。要するに地元に金が落ちさえすれば良いという立場のようだ。そりゃあ観光地の宿泊施設や土産物屋に行ってインタビューをすれば、そういう返事が来ることは容易に予想できる。記者が現地に行かなくても、AIにキーワードを入れればすぐに書ける記事である。そんな記事に価値があるのかと問いたい。

 コロナ騒ぎの少し前、日本の観光地は韓国と中国からの観光客で溢れ返った。九州の太宰府であっても、参道から聞こえる声は韓国語と中国語だった。参詣するに際してのマナーの話は横に置くにしても、余りの混雑に行く気をなくした。神社・仏閣が観光地であることは認めるにして、ディズニーランドやユニバーサル・スタジオ・ジャパンと同じに考えて良いのだろうか。日本に限らず世界の多くの国において観光地とされている宗教施設は数限りない。現地のまともな信者達は、観光客による喧騒に辟易としているのではないだろうか。

 なぜインバウンドが嫌いか。観光客として行くにしても受け入れるにしても、訪れた土地に対する基本的心構えが出来ていない人が多いからである。行き先の政治形態も文化も宗教も習俗も知らず、団体で乗り込んで行ってまるで自国にいるかのようにに振る舞う、その思い上がった俗悪さが嫌いなのである。間違ってほしくないのだが、この旅行者に対する嫌悪感は、近年日本を訪れている観光客に対して持っているだけではない。1970年代から旅の恥はかき捨てとばかりにご乱行を続けてきた日本人の団体客にも向けられている。旅行者が落とす金に目がくらんで、媚びへつらう観光業者も嫌いだ。結果として、そういう醜い人間集団を生み出すインバウンドが嫌いだと云っているわけだ。

 などと書いていたら姻族壊滅、卒寿を過ぎた妻の両親、その娘3人が新型コロナに感染した。新型コロナ自体についてはさほど心配をしているわけではないが、母親の脱水症状が進んでいたらしく、コロナ病棟に収監されてしまった。そういう訳で、父親にはモルヌピラビル、母親にはレムデシビルという評判の悪さに反比例して薬価の高い薬が投与されているようだ。母については入院中で会うことも適わないため運を天に任せるしかないが、父親のモルヌピラビルについては服用を止めてもらっている。もう少し早く知っていれば母も脱水状態にならないよう、なんとかできなかったなと思ったが、これは私の思い上がりだろう。

 最終的には全員がコロナ罹患者となった。自宅待機などという規制があるためなかなか思い通りには出歩けないため、私が思いついた必要品をチマチマと届けている。といっても、十分に手が行き届いているとは言い難い。先月のクリスマス頃からの騒動であるため、年賀状書きも停止したままである。このブログの読者で年賀状が来ないと心配してくれている方々、私は元気です。

 二日ほど熱が下がっていた父が、今朝また39℃近い熱を出したという連絡があった。肺炎が怖いな。病院は休みだ。肺炎と一言で言うが原因が細菌であるか、ウィルスであるか、あるいはマクロファージであるかによって治療に使う薬が異なる。半端な知識を持っているとはいえ、素人が手出しをするのは憚られる。あと数日はこの状況が続くだろう。インバウンドについてもう少し書きたかったのだが、一応ここまでにしておく。


カテゴリー: 雑念雑話 | インバウンドは嫌いだ はコメントを受け付けていません

歴史生物学 TCA回路への異論 7

 時間が空き過ぎた。書いている本人も以前の部分を忘れてしまっていた。我がままなお願いだが、以前の投稿を読まれた上でお読みになったほうが理解が進むと思います。

 され、カイコについて少しばかり深堀りし過ぎたかもしれない。読者の中には「こいつは何を言いたいのだろうか」と違和感を感じた人がおられるのではないか。書いた本人もそれが正常な感覚であり、私の方が幾分、いやかなり異常であると自覚している。簡単にまとめてみよう。素直に常識に従えば、TCA回路はエネルギーを生産する好気的回路である。一部の中間体から、生物の生存に必要な物質群への経路が分岐するとは云え、解糖系とTCA回路を通って1分子のグルコースが酸化されると38分子とか36分子とか30分子ののATPが生産されるという考えは、生化学における「公理」に近いものがある。

 つまり、世の常識の枠内において、TCA回路による炭素固定などと云う話題はエネルギーを必要とする系であって、エネルギー産生系であるTCA回路の解釈とは全くカテゴリーの違う話と認識せざるを得ない。それ故に、微量であるとはいえ、カイコがTCA回路を通して炭素固定を行ったいうことの話題性があったのだと思う。ここにおいて、TCA回路がエネルギー生産系であるとする常識を守るためにどう捉えればよいかと思惟すれば、炭素固定はTCA回路に入る前の段階で起こっている反応であり、TCA回路を回るのは「固定がおわった後の話である」とするのが、最高の解釈であろう。そうすればTCA回路の神話は揺るがないわけである。カイコの炭素固定についての私の考察は、このTCA神話を信じる人々に対する援護材料になるのかもしれない。ここまでカイコにおける炭素固定にこだわって書いてきたにも拘わらず、そんな事は私に取ってたいしたことではないなどと云うと怒られそうだが、一寸面白かったのであれこれ考えてみたに過ぎない。

 それはそうとして、TCA 回路が本当に好気的であるのかという問題は残るだろう。薬学会の定義に於いては、「糖、脂肪酸、ケト原性アミノ酸の炭素骨格を酸化する代謝経路であり、好気的な条件下でエネルギー獲得に中心的な役割を果たす。」と明確に書いてある。KEGGにおいても「Krebs cycle is an important aerobic pathway for the final steps of the oxidation of carbohydrates and fatty acids. クレッブスサイクルは炭水化物や脂肪酸を酸化する最終段階の重要な好気的経路である。」と述べている。これに対し、筆者はTCA回路と酸化的リン酸化反応は分けて考えるべきであり、そうした場合 TCA 回路は好気的経路ではないと述べた。この部分について、もう少し議論を続けたい。

 こういう屁理屈を唱えると、グリコリシスは細胞質に存在し、TCA回路はミトコンドリアに存在する。グリコリシスで生産されるNADH2は、細胞質においてピルビン酸あるいはアセチルCoAから誘導されるアセトアルデヒドの還元に使われるが故に、グリコリシスは嫌気的系路であり、ミトコンドリア中のTCA回路で生産されるNADH2やFADH2は、酸素を消費する酸化的リン酸化に使われるが故に、TCA回路と酸化的リン酸化を一体のものと捉え、好気的系路として考えるのが正しいという反論を受ける場合が多い。長い間、この反論に反駁できず、もやもやとした違和感に囚われていたのだが、近年になって上記の反論が間違っていることに気が付いた。疑問を持って20年近く経っていた。常識が造る馬鹿の壁を乗り越えるのはとても難しいことに改めて気付かされたのである。

 細胞質内で、グリコリシスを通って生産される2NADH2は、ピルビン酸あるいはアセチルCoAから誘導されるアセトアルデヒドの還元に使われる。従って細胞質内の酸化還元の状態は一定に保たれる。また、グリコリシスにおいてその系路中で酸素を消費するような段階は存在しない。この論法に従えば、グリコリシスは還元的に進行し、2ATPを生産すると考えられる。学生の頃偉い先生からそう言われて、なるほどそういうものかと盲信していた。しかし、よくよく考えるとそれは乳酸醗酵でありエタノール醗酵である。嫌気的条件下で起こる乳酸醗酵であってもエタノール醗酵であっても、生成したピルビン酸はTCA回路へは流入せず乳酸かエタノールを生産する。この時点で、解糖系においては1分子のグルコースから生産されるATPは2分子であるとする言説は正しい。しかしながら、嫌気的条件下で機能している解糖系を、好気的条件下で機能しているTCA回路をリンクさせて記述するのは矛盾を含むのである。ピルビン酸を供給しないグリコリシスをTCA回路とリンクさせて考える、その時点で矛盾が生じているのである。そもそも、エタノール醗酵を行っている酵母においては、ミトコンドリアはほとんど発達していないのである。

 ではどう考えれば良いのか? 一般的な生化学の教科書に書いてある内容は、おおむね以下のようにまとめることができる。

グルコース1分子あたり、解糖系を通って2分子のATPが消費された後、4分子のATPが生産されるので、正味2分子のATPが産生されるが、同時に解糖系では2分子のNADH2も生産されるのだが、NADH2の1分子から、3分子のATPが産生されるため、計6分子のATPが生産される。(*: 実際には、細胞質に存在するNADH2のミトコンドリア内部への輸送に伴い、1分子のNADH2に対して1分子のATPを消費するため、2分子のNADH2から産生される正味のATPは4分子となる。)

ピルビン酸が脱炭酸反応で酸化されてアセチルCoAが生産される際に、2分子のNADH2が副生されるので、これが酸化的リン酸化系を通ると6分子のATPが作られる。

(以下、TCA回路を流れるアセチルCoAは2分子であることに注意)

TCA回路のスクシニルCoAからコハク酸の段階で(グルコース1分子あたり)2分子のGTPが生産されるが、GTPはATPと等価な高エネルギー物質でありATPに変換可能であるため、2分子のATPが生産されたと見なす。

 TCA回路全体で、NADH2は(グルコース1分子あたり)6分子生産されるので、これらから18分子のATPが生産される。

 TCA回路のコハク酸からフマル酸になる段階において、FADH2が(グルコース1分子あたり)2分子生産されるが、FADH2の1分子当たり2分子のATPが生産されるため、計4分子のATPが生産される。

 生産されるATPを合計すると36分子ということになるのだが、38分子のATPが生産されるという計算においては、細胞質のNADH2をミトコンドリアに輸送するときに消費されるATPを考慮していない場合を意味している。また、実際の反応においてはプロトンが必ずしもATP生産に使われるとは限らず他の系路で消費される場合もあるため、NADH1分子からATP2.5分子、FADH21分子からATP1.5分子が生産されるとして換算し直すと

解糖系 2 ATP

解糖系NADH2  2×2.5ATP – 2ATP(輸送で消費)= 3 ATP

ピルビン酸の脱炭酸反応 NADH2 2個x2.5 ATP = 5 ATP

TCA回路 GTP 2x1 ATP = 2ATP

TCA回路 NADH2 6個x2.5 ATP  = 15ATP

FADH2 2個x1.5 ATP = 3ATP となり

となり、全体では計30分子のATPができるということになる。

 何が言いたいのかといえば、解糖系の中で《ピルビン酸が脱炭酸反応で酸化されてアセチルCoAが生産される際に、2分子のNADH2が副生されるので、これが酸化的リン酸化系を通ると6分子のATPが作られる。》という記述に従えば、解糖系は嫌気的系路であるという大前提が崩れるのではないかという疑問である。そしてその疑問はそのままの形でTCA回路の好気性の問題に係わってくるのである。解糖系のグリセルアルデヒド 3-リン酸が 1,3-ビスホスホグリセリン酸 に変換される反応において、2分子のがNADH2が生産されるのだが、これがミトコンドリアに取り込まれATP生産にカウントされている。ピルビン酸の脱炭酸反応は解糖系に含まれないし、TCA回路にも含まれないと云う解釈で、ここで生産されるNADH2は無視できたにしても、グリセルアルデヒド 3-リン酸が 1,3-ビスホスホグリセリン酸 の段階で生産されるNADH2はどう考えても無視できない。解糖系が嫌気的代謝系であると云う言明を生かすとすれば、TCA回路も酸化的リン酸化のプロセスを切り離して嫌気的回路であるとせざるを得ないのである。

 結論としては、人を含む好気的生物に於ける解糖系を好気的代謝系としその際に機能しているTCA回路も好気的代謝系と定義するか、あるいは両代謝系から酸化的リン酸化を切り離して双方ともに嫌気的代謝系と定義するしか方法はないように思える。

 この当たりの概念の混乱は、解糖系を醗酵と云う立場から見ていたグループと筋肉生理という立場から見ていたグループ間の意見の相違、さらにはATP(エネルギー)生産がTCA回路の意義であると云う前提の基で研究を続けたHans Krebs の研究結果などが入り交じって起こったのであろう。

 では、上に書いた混乱が納まればそれで良いかと問われた時、まだ納得できない私がいる。研究者として、自分の足下を掘るなと忠告や助言を受けたことが何度もあるのだが、研究を進めるに当たって自らが立脚している学問の基盤を、常に見直す営為は不可欠であると考えている。(だから業績が上がらない)では、何処が腑に落ちないのか。TCA回路を歴史的な視座から眺めると、幾つかの疑問が浮上するのである。TCA回路は、いつ地球上に現れたのだろう?初めて出現したTCA回路は、現在の系路と同じものであっただろうか?それとも、不完全な系であったのだろうか? TCA 回路が好気条件下で働く系路であるならば、嫌気的条件下で生きる生物にはTCA回路は存在するのだろうか、それとも存在しないのだろうか?TCA回路から酸化的リン酸化を切り離した時、TCA回路の存在意義はどうなるのだろう?

カテゴリー: TCA回路への異論, 歴史生物学 | 歴史生物学 TCA回路への異論 7 はコメントを受け付けていません