Tajikistan residents called for food for two years and be prepared for protection of sovereignty

 1 Apr 2022  https://www.silkway.news/tajikistan-residents-called-for-food-65152/

President of Tajikistan Emomali Rakhmon called on citizens of the country due to the tense and dangerous political and economic situation in the world to stock food for two years. His words are given on the website of the head of state in the text of congratulations on the occurrence of the month of Ramadan.

Today, in addition to the problems associated with climate change, its negative consequences, the infectious disease of COVID-19, the lack of food and price increases, all human society is deeply concerned about the unstable situation in individual regions and countries of the planet. … in this regard I would like to emphasize once again that each family should think about ensuring your family, to produce as much as possible and stock food for two years as possible, “said Rakhmon, whose words leads RBC.

The President of Tajikistan noted that humanity is now “in the most sensitive and challenging period” history, whose consequences “are unpredictable and long-term.” “This year will be the most difficult and difficult for humanity in all respects and, above all, in terms of ensuring food security,” the head of the Tajik state suggested.

In the conditions of the “extremely tense” setting in the world, it is necessary to be cohesive and vigilant, ready to protect the sovereignty and security of the state, the President of Tajikistan added: “When the political, military, economic and social situation in the world is extremely tense, crisis, complex and dangerous, The issue of independence and freedom of individual countries and their statehood is seriously raised, which encourages each of us to be cohesive and ensure the security of the state and society. We are obliged to always be ready to protect the invaluable gift of our life – state independence and its achievements. “

 エイプリルフールの話題に過ぎないのなら良いのだが、ヨ−ロッパ諸国では購入制限や配給制導入のニュースがいくつも流れている。

スイスの備蓄制度・・・4年に一度備蓄計画の見直しが行われている。
義務貯蔵(:de:Pflichtlager) – スイスが供給危機による影響を受けている場合、又はスイスが国際的に放出を義務づけられている場合にのみ、連邦国民経済大臣の決定により放出することができる備蓄
 1:義務的責任在庫(obligatorische Pflichtlagerhaltung) – 連邦政府が民間企業と契約している4か月分(目標6か月)を乗り切る食料、エネルギー、医薬品の備蓄
 2:任意的責任在庫(freiwillige Pflichtlagerhaltung) – 連邦政府が民間企業と契約している政府指定の備蓄物資以外の備蓄品
家庭内備蓄(Haushaltvorrat) – 各家庭にパンフレットを配り推奨している備蓄
 基礎的備蓄(Grundvorrat) – 食料14日分
 追加的備蓄(Ergänzungsvorrat)- 食料以外(生理用品、燃料、ペットフードほか)
 飲料備蓄(Getränkevorrat)- 飲み物2日分

                      ウィキペディアより一寸変えて引用

カテゴリー: 未分類, 雑念雑話 | Tajikistan residents called for food for two years and be prepared for protection of sovereignty はコメントを受け付けていません

不安だな

 近頃、政府が地震の発生が近いとする情報を出し続けている。北海道東岸域、東北から関東までの太平洋側、東海から日向灘に連なる東南海ー南海地震域、首都直下型地震の可能性、沖縄近海もだ。能登半島沖から秋田県西岸域もキナ臭い。太陽活動が激しくなると、地震の発生確率が上がるという説もある。先日からCME(太陽でのプラズマ爆発現象)のせいでデリンジャー現象が起こっているみたいだ。

 来るものはしょうがない。ある程度の物質的、精神的備えをしておくしか方法はない。何しろ地震予知は必ず当たる。このあたりは危ないといっておけば、いつかは起こるからである。では何時起こるのか。これはわからない。緊急地震速報を当てにしている人が結構いるようだが、あれは遠くの地震には有効だが直下型の地震には対応できない。P波とS波の伝わるスピードの差を利用したシステムであるため、直下型の地震においては、緊急地震速報が出る前に強い揺れが襲ってくる。あのシステムは地震予知研究会だったかな、なかなか予知ができないじゃないかという批判を躱すために・・・むにゃむにゃ。

 火山活動もすごく活発である。世界の状況と同期しているような風情である。何でこんなことを書くかといえば、ここ数日、雲がおかしい。いわゆる地震雲とされている形の雲をよく見かける。今日は長い時間西から東に肋骨状形地震雲あるいは弓状型地震雲ともみえる雲が流れていた。もっとも、予知に繋がる地震雲が本当にあるのかどうかは知らない。信じるのかと聞かれれば、いまの所余り信じないと答えるだろう。

 とはいえ、今回気になるのは、入るはずのないAM局が聞こえているからだ。地震予知にFM電波が使われる例は聞いた事があるが、地震前にAM電波が異常を示すとは聞いた事がない。春先とか秋口に電波の受信状況が乱れるという現象があるのは聞いた事がある。現在も電離層が何らかの撹乱を受けているという事だろう。

 そうだ、今日昼過ぎだったかな、東南の空に彩雲がでていた。大きなものではなかったししばらくしたら消えてしまった。以前もっと大きな彩雲がでた時も大きな地震は起こらなかったので無視していたのだが、ヤフーニュースによれば佐賀県でも大きな彩雲が見られたという。だからといって、なんだというつもりはない。いろいろな現象が重なっていますねというだけです。

 どうせ何時かは起こるものだから、いわゆる地殻プレート間で起こるM8~M9の巨大地震だけでなく、プレート内で起こるM7.5前後の地震にも注意しましょうねという話に過ぎない。後は読者のリテラシーにお任せする。では


カテゴリー: 雑念雑話 | 不安だな はコメントを受け付けていません

ケシは何故「モルヒネ」を作るのか?


 炎帝神農は古代中国の三皇五帝の一人で、人々に医療と農耕の術を教えたという。その彼が、日々、百草の汁を舐めてその薬効と毒性を調べ続けた結果は、3世紀の初めに彼の子孫によって「神農本草経」として集大成されたのだが、それは、我が国で云えば卑弥呼の時代とほぼ同じである。これより古い黄帝内経や16世紀に上梓された本草学の集大成である「本草綱目」など、植物成分を毒あるいは薬として捉える歴史は思いもよらぬほど遠い過去にその源泉を持っている。

 この植物を薬あるいは毒として使うという悠久とも云える伝統の下で、未だ持って解決されていない根源的問題がある。植物はなぜ、薬(毒)を作るのかという疑問である。但し、前の文章は決定的に不完全な文章である。植物だけではなく微生物も動物もそれ以外の生物も薬(毒)といえそうな物質を作るし、薬(毒)として作用する対象生物もまた微生物、植物、動物およびその他の生物と多岐にわたる。私の知る限り、こうした複雑極まる関係をすっきりと解説した研究者はいない。

 今までなされてきた説明は、機能を持つ物質を作る側とと作用を受ける側の生物種の広がりの中から、ごく一部の例を抽出して、その例だけに焦点を当てた説明をしているに過ぎない。しかしながら、「ケシは何故「モルヒネ」を作るのか」などという懐疑は、「大麻は何故テトラヒドロカンナビオールを作るのか」、「キハダは何故ベルベリンを作るのか」、「ジギタリスは何故ジギトキシンを作るのか」などという多くの疑問と全く同じカテゴリー・ヒエラルキーに属する懐疑である。一つ一つの問に異なる事由がある事は認めるにしても、全ての事象に通底する説明があるのではないかと考え続けてきた。

 さらにだが、一つの生理活性を持つ代謝物に到達する系路の堵中には、生理活性を持たないが故に話題の端にも上がらない数多くの代謝物いくつも存在する。これらの不活性な代謝物を含めて包括的かつ合理的説明があるに違いないと思い続けてきたのである。

 しかしながら、全ての生物の全てのケースを網羅して、今までに行われてきた論理構成を基に説明しようとすれば、余りにも膨大なスペースが必要となるし、論理自体が相互に矛盾してしまう事は避けられない。従って、まず俎上にあげる問題においては植物のアルカロイドに限定し、そこで成立した仮説が他の問題群に敷衍できるかどうかを検証するという形で進めて行く事にする。

アルカロイドとは

 さて、薬学や天然物化学を専攻している研究者にとって、アルカロイドと呼ばれる物質群は、構造だけでなく生合成経路も複雑怪奇であるのみならず、薬としても毒としても働く化合物を含んでいる。アルカロイドの蠱惑的とも思える程の生理活性の広がりは、多くの研究者達を魅了し続けてきた。種々のアルカロイド、例えばモルヒネでありコカインでありストリキニンなどについて、それらの生合成経路や作用機作についての個別的な研究は目覚ましい進展を見せてきた。しかし、植物は何故、そんな化合物をつくるのだろうか?

 植物の作るアルカロイド類、現在10,000種を超えるほどの化合物が知られているようだが、これら化合物群の存在理由に対して識者はどのような説明をしてきたのだろうか。こうは書いても、まずアルカロイドという用語をどのような範囲の化合物に対して使っているのかが明確でないと議論は始まらない。古い本を紐解けば、「植物塩基である」・「分子内に窒素を持ち、植物体内で生合成される大きな化合物群をいう。多くのアルカロイドは強い薬理活性を持つ。アルカロイドにはコカイン、ニコチン、ストリキニン、カフェイン、モルフィン、ピロカルピン、アトロピン、メタンフェタミン、メスカリン、エフェドリンそしてトリプタミンなどが含まれる。」などと書いてある。簡単にまとめると、「植物の作る塩基性の窒素化合物で、その多くが強い生理活性を持つ」となるだろう。

 この定義は昔から知られている典型的な化合物群に対して成立するに過ぎないとはいえ、感覚的にはとても分かりやすい。だが、これでは近年の進歩について行けず、アルカロイドの全貌はつかめないだろう。ウェブ上に、帝京大学薬学部附属薬用植物園の木下武司氏によって非常によくまとめられたサイトがある。(http://www2.odn.ne.jp/had26900/index.htm) その中からアルカロイドについてという部分を少し改変して引用する。(意味が変わらないように気を付けたつもりだが、ご本人の意図と変わっていた場合は私の責任である)一寸長いが以下の《》で括られた部分である。

《1.アルカロイドの分類について 

 植物の中には分子内に窒素を含み塩基性を示す化合物を含むものがある。これらは古くからアルカロイド(alkaloid)と総称されているが、”アルカリのようなもの”という意味からわかるように語源的にはアルカリ(alkali)と同じである。和訳として「植物塩基」が用いられた時期もあったが、今日では動物起源のアルカロイドも知られていること、また以下に述べるように、一般にはアルカロイドと認識されていても塩基性でないものも実際に存在するので、この訳語を用いるのは適当ではない。これまでに単離されたアルカロイドの化学構造は極めて多様であるので、様々な分類法が提唱されている。最近、よく用いられるようになったのは生合成的起源による分類法であり、またこれが新しいアルカロイドの定義ともなっている。まず次の3つのタイプに大別されている(定義:最新の知見に基づいて2012年4月に修正)。


1)基本骨格、窒素源ともにアミノ酸に由来し、生合成過程でアミノ酸は脱炭酸を伴う
2)基本骨格がアミノ酸に由来せず、窒素源はアンモニア性窒素ないしアミンである
3)基本骨格、窒素源ともにアミノ酸に由来するが、脱炭酸を伴わないで生成する


 1)に属するものを真正アルカロイド(true alkaloid)、2)に属するものをプソイドアルカロイド(pseudoalkaloid)、3)に属するものを不完全アルカロイド(protoalkaloid)と称し、真正アルカロイドについてはさらに前駆体となるアミノ酸の種類によって、例えばトリプトファン由来アルカロイドなどのように分類される(→詳しくはアミノ酸経路を参照)。プソイドアルカロイドとしては、ジャガイモの芽に含まれるソラニン(Solanine)などに代表されるステロイドアルカロイド(steroid alkaloid)、 アコナン系ジテルペンを母核しトリカブト毒素として名高いアコニチン(Aconitine)*やコウホネアルカロイドなどテルペンアルカロイド(terpenoid alkaloid)、 セリ科ドクニンジンの有毒成分コニイン(Coniine)などポリケチドアミン(polyketide amine)などがある。不完全アルカロイドとは、具体的には特殊な芳香族アミノ酸であるアントラニル酸、ニコチン酸を前駆体とするアルカロイドであるが、これらは生合成経路の上で脱炭酸を伴わない点で通常のアミノ酸を前駆体とするアルカロイドと区別される。ミカン科植物にはアントラニル酸を前駆体とするアルカロイド(例 ゴシュユアルカロイド)が特に多いことで知られる。不完全という名前を冠しているので生合成反応が未完成という意味で名付けられたようであるが、ゴシュユアルカロイドについてはトリプタミンとアントラニル酸のアミド縮合体にC1単位が導入されただけなので”不完全”というのは理解できるが、アントラニル酸、ニコチン酸由来のアルカロイドの中には複雑な生合成過程を経るものも多くあるので誤解しやすい。アントラニル酸、ニコチン酸はアミノ酸に似て非なるものとして”いわゆるアミノ酸”に含めないこともある(特に生化学領域では)ので、そのような定義に立てば不完全アルカロイドは「窒素源をアンモニアないしアミン、アミノ酸に由来しないアルカロイド」ということになろう。》

  一寸長い引用だが、1)、2)の部分については歴史的な定義を基礎にした定義で、とても分かりやすく何の異論もない。3)の項は、例外規定としての位置づけであろう。しかし、ゴシュユアルカロイドの原料はアントラニル酸とトリプタミンである。私見だが、アントラニル酸にこだわらずトリプタミン由来のアルカロイドと見なせば、例外扱いする必要はなさそうに思う。ニコチン酸由来のアルカロイドについては、植物におけるニコチン酸の生合成がアスパラギン酸から誘導されるイミノアスパラギン酸と1,3-ジヒドロキシアセトンリン酸との反応で生成するキノリン酸を通って起こる事を考えれば、この部分に対応するアルカロイドもアスパラギン酸に由来するとして良いのではないだろうか。これは、出発物質を何処に置くかの議論に過ぎなくなるのかもしれない。

 現実はどこまでもつながっているのにこれを分節して語ろうとする場合、「分節」のやり方には個人の恣意性が反映されるため、境界領域で意見の差違が現れるのは避けられないだろう。大まかにまとめれば、誰が見ても間違いなくアルカロイドと言える化合物群の周辺に、アルカロイドと見ても差し支えない物質群が存在し、その外側にアルカロイドかもしれない物質群、さらにその外側にアルカロイドとは思えない物質群が存在しているということに過ぎない。生合成による分類においては、色々な生合成系でつくられた物質が、さらに結合して生起した物質群を、複合系路による生成物として棚上げにしているではないか。そうした、棚上げを行う以外に分類に関する悩ましさを解決する方法はないと思う。ともあれこれからの議論においては、木下氏の分類による1、2、3の範囲で植物が作る物質群を対象とする。

モルヒネの存在意義

 先述したとおり、植物が他の生物に対して薬になったり毒になったりする成分を何故作るのかという疑問は、子供でも思いつく何の変哲もない疑問なのだが、これに真摯に答えるのは途方もなく難しい。2017年に「植物はなぜ薬を作るのか」という、そのものずばりの本が文春新書から出版された。直ぐに購入し期待して読んだのだが、予想通りの内容で全く腑に落ちなかった。これは著者の記述を誹謗しているのではなく、著者と私が依って立つパラダイムとの違いに由来するものである。例えばモルヒネ、ケシがモルヒネを作る理由を上記の本では以下のように説明している。47ページから該当する部分を引用すると、《モルヒネは血圧低下や呼吸抑制のような強い毒性作用もあり、動物がケシを大量に摂取した場合は死に至ります。植物であるケシにとっては、捕食者となる動物から自分を守るための防御物質がモルヒネであり、そのためにつくっているのです。》と書いてある。何となく分かりやすいといえばそうなのだが、どこかで誤魔化されているような気がしないでもない。多分間違っていると思う。

歴史生物学の提唱

 私は、生物学において起こった事象の時間的な前後関係を重視する立場から、歴史生物学という新たな枠組みの必要性を提唱しているのだが、この歴史生物学においては、その名前があらわすように、生物界で起こった事象の前後関係(歴史性)を重視する。この立場から見ると、「1. 何らかの理由でケシはモルヒネを作った。」、「2. そのモルヒネは強い生理活性を持っていた。」「3. モルヒネが作られた後の生存競争において、ケシは有利であった。」という時系列になるに違いない。2、3の部分のストーリーは正しいかもしれないが、モルヒネの生理活性はケシがモルヒネを作った理由にはなり得ない。歴史生物学にとっては、ケシが最初にモルヒネを作った「何らかの理由」こそが問題であり、モルヒネの生理活性は事後に発生した付録なのである。少し長く複雑な話になるが、以下の論証に付き合って欲しい。

ケシは何故モルヒネを作るのか・・・歴史生物学からの答え

 そこでまず、よく知られかつ典型的なアルカロイドであるモルヒネを例に、「ケシは何故モルヒネを作るのか」という疑問に答え、次にその論証が他の植物アルカロイドにも演繹できるかどうかを検証してみたい。ケシがモルヒネを作る理由を、モルヒネの生理活性に求めるのではなく、モルヒネが作られるプロセスの中に求めるとすれば、モルヒネの生合成経路を基盤におかなければならない。従って、幾分難解に感じる人が多いとは思うが、モルヒネの生合成経路を簡単に示す事にする。

モルヒネ生合成系1


モルヒネ生合成系2

 イソキノリンアルカロイドというグループに分類されている一見複雑な構造を持つモルヒネだが、この化合物は2分子のチロシンから生合成される。そこでチロシンからモルヒネまでの生合成を、チロシンから(R)-Reticulineまでの系路と、(R)-Reticulineからモルヒネまでに分けて記述したい。何故 (R)-Reticulineで区切るのか?他意はない。ChemDrawの図1枚では描ききれなかったからに過ぎない。各段階に記載している数字は、ECナンバーである。まず、図-1から始めよう。

 モルヒネの生合成に於いては、オキシゲナーゼの作用によって2分子のチロシンがフェノール性水酸基のオルト位に水酸基が導入されたL-Dopaとなった後、脱炭酸を受けて2分子のドパミンが生成する。1分子のドパミンは1級アミンオキシダーゼの作用を受け3,4-ジヒドロキシフェニルアセトアルデヒドに変換される。このアルデヒドは、反応を受けていないもう1分子のドパミンとの間で脱水縮合を起こしシッフ塩基を形成した後、キノリン環を形成して (S)-Norcoclaurineを形成する。(S)-Norcoclaurineに存在するテトラヒドロイソキノリン環の2位の窒素原子と6位の水酸基がメチル基転位を受けて(S)-N-Methylcoclaurineとなった後、もう一つの芳香環の3’位がモノオキシゲナーゼによる水酸化を受けて3′-Hydroxy-N-methyl- (S)-coclaurineへ、3′-Hydroxy-N-methyl-(S)-coclaurineの4’位の水酸基がメチル化を受けて(S)-Reticulineを与える。

 モルヒネへ向かう反応系は、(S)-Reticulineから(R)-Reticulineへと異性化された後に進んでいくのだが、この一対の光学異性体間の変換反応はいくぶん不可解である。図-1に示した下側の系を通るのであれば一旦酸化して不整炭素を消した後、立体特異性を持つ還元酵素1.5.1.27の作用で(R)-Reticulineを生合成すると説明できるのだが、Laudanineの存在がどうも気になるのである。私が考察を進める際に指針としているKEGGにおいて、酵素2.1.1.291の反応の方向が(R)-Reticulineからも(S)-ReticulineからもLaudanine生成の方向に向かっているのである。この点については、平衡定数がLaudanine側に寄っていると云うことで、反応自体は可逆反応であると理解しておくことにする。それにしても7位の水酸基のメチル化あるいは脱メチル化に伴い、どのようなメカニズムで1位のラセミ化が起こるのか、この点については私自身が理解できていない。

 図-2に移る。Salutaridine synthaseと呼ばれるP450に分類されるオキシゲナーゼにより、2つのベンゼン環の間でC-Cフェノールカップリングと呼ばれる結合が起こりSalutaridineが生成する。この反応については、要するに酸素原子上に発生したラジカルを結合する炭素上に動かせばよい話である。次にSalutaridineのカルボニル基が立体選択的に還元されてSalutaridinol、生成したSalutaridinolの水酸基がAcetylCoAによるアセチル化を受けて7-O-Acetylsalutaridinolになる。Acetylsalutaridinolのフェノール性水酸基による攻撃と協奏してアセトキシル基が脱離する反応が、酵素の存在なしに進行してThebaineが生成する。

 モルヒネ生合成に於いては、メトキシ基を酸化的に水酸基に変更しながら反応を進める酵素が重要な役を果たしている場面があるが、ThebaineからNeopinoneへの変換はその例である。多分だが、メチル基が水酸化を受け生成したヘミアセタールがホルムアルデヒドとエノールへと変換される反応であろう。こうして得られるNeopinoneはより安定なαβ不飽和ケトンへと自動的に異性化しCodeinoneとなる。後は簡単である。Codeinoneは立体選択的にre面からのヒドリド還元によりCodeineに、Codeineに残っているもう一つのメトキシ基がやはり酸化的に水酸基へと変換されてMorphineが完成する。

 Thebaineを基点とするもう一つの生合成系は、反応の順序が入れ代わった系と見ればよい。Thebaineの4’位に由来するメトキシ基が先に酸化的に水酸基へと変換されてOripavineとなった後、6位のメトキシ基が同じく酸化されてMorphinoneとなり、続いて立体選択的にre面からのヒドリド還元が起こりMorphineの生合成が完成する。

 さて、これら2枚の図を連続して並べて上記の説明を付ければ、初学者や一般人を「これがモルヒネの生合成系だ」と納得させることは難しいことではない。専門家と言われる人でさえ、そう信じているように見える。「だが」である、次の図を見て先の系をモルヒネの生合成系として議論をすることができるのか。

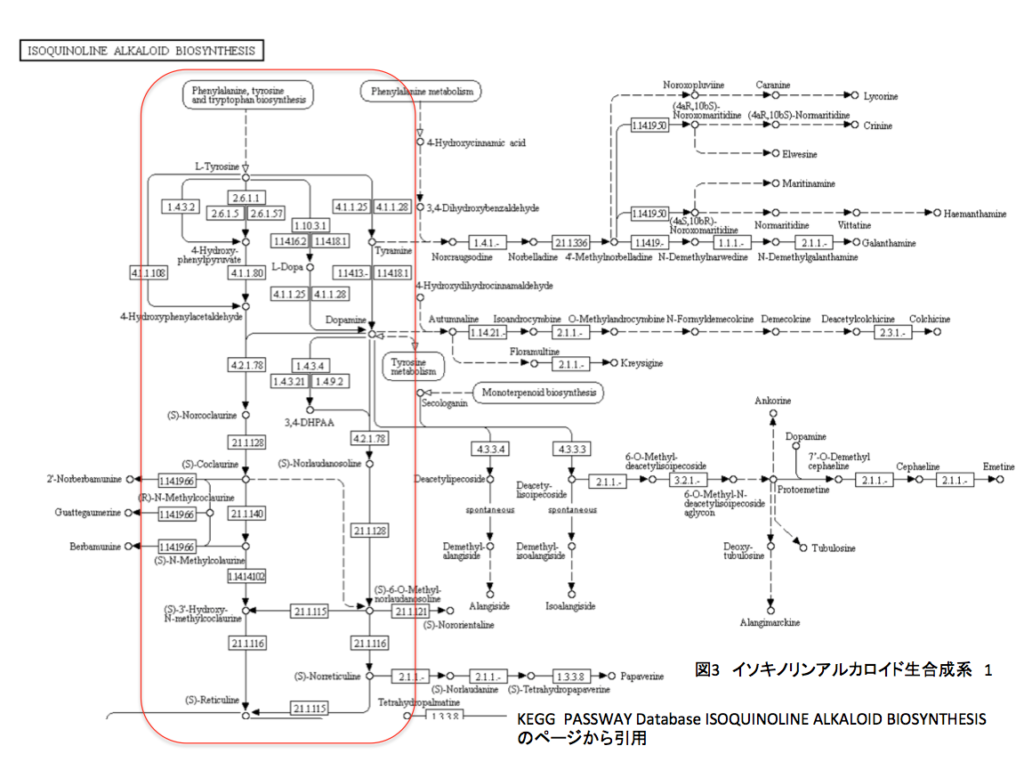
イソキノリンアルカロイド生合成系1
イソキノリンアルカロイド生合性系2

 図3と図4はモルヒネ生合成系の外側に流れている代謝系を示しているが、赤い丸で囲んだ部分がモルヒネの生合成系の部分である。要するに、モルヒネという1つの代謝物が、ヒトに対して特異的な活性を持ち薬学という分野で大きな興味をもたれたが故に、その部分だけがモルヒネ生合成系として分節されていたに過ぎない。構造主義的な話になってしまった。しかし、モルヒネの作られる理由は、モルヒネの周囲に存在する近縁の周辺化合物にも演繹が可能でなければならないと考えるべきである。

 さらにモルヒネが作られた後、そこで代謝が止まるのではない。モルヒネまでの代謝系をモルヒネ生合成系と分節したのは、モルヒネに興味を持った研究者の偏見に過ぎない。作られたモルヒネは一時的に蓄積されるにしろ、その分解系によって代謝されていくのである。故に、モルヒネが最終生産物であり、その含有量は増え続けなければならないとする思い込みは、分節をした研究者の脳内にある妄想に過ぎない。妄想は失礼かもしれない、偏見にしよう。

 では、このモルヒネ生合成系のどの段階に、作られる理由があるのか。一言「この段階だ」と指摘すればそれで済む話なのだが、その指摘を納得してもらうためには、二つの事実を知っておいてもらう必要がある。一つは植物にとって窒素はどういうものであるかという理解であり、いま一つはごく初歩的な有機化学の知識である。

 まず植物にとって窒素とは何であるかという話から始めたい。よく知られているように窒素、リン酸、カリは植物が多量に必要とする肥料の3要素である。植物は基本的には窒素飢餓状態にあるため、窒素肥料が与えられると生長は大きく促進される。もっとも、窒素分が充分に以上に与えられると、植物体は大きく、柔らかく、ジューシーになる。この結果、病虫害が多発することが多く、植物にとっては余り好ましくない。野菜類における窒素過剰は苦味をだす事が多いのみならず、硝酸体窒素による健康障害を引き起こしてしまう。我々にとって健康に良い野菜とは、少々見窄らしく生育不良のものが良いのかもしれない。

 さて、窒素は地球上に無尽蔵とでも言えそうな量が存在する。何しろ大気の80%が窒素である。ところがこの窒素は、2個の窒素原子が3重結合をしている分子であり、窒素原子間の結合エネルギーが 225 Kcal/mol にもなる極めて安定な分子である。従って、植物はこの分子状窒素を直接には利用できない。植物が利用できる窒素は、近年アミノ酸も利用できるという話が流れているとは言え、アンモニア態窒素(NH4+)あるいは硝酸態窒素(NO3–)であると考えて大きく間違う事はないだろう。

 従って、長い地球の歴史の中で植物が利用することができた窒素は、雷(放電)に伴い空気中の窒素から生成する窒素化合物に由来するものであり、いま一つはいくつかの種類の真正細菌(シアノバクテリアも含めている)と一部のメタン細菌が固定した窒素に由来するものであった。現在では、ハーバー・ボッシュ法によって、生物が生産するのとほぼ同量のアンモニアが工業的に生産されている。これは極めて多量のエネルギーを必要とする方法であり、現在人類が消費するエネルギーの1%がこの窒素固定反応で消費されているという。少しだけ話がそれるのだが、この窒素固定反応が本当に人類は幸せにしたのかどうか、なかなか一概には答えられない問いであるようだ。

 フリッツ・ハーバーとカール・ボッシュによって成し遂げられ、歴史上最も重要な発明の1つであるこの窒素固定法だが、ノーベル賞を受賞した後の2人の後半生は哀しい。ハーバーはユダヤ人であったために、ナチスによって母国ドイツから追放され数カ国を転々とするが、毒ガス兵器の開発に携わったことで科学者仲間からの風当たりが強く、失意の中、イスラエル建国に参加しようと移動中にスイスで客死した。(1934年バーゼル)ボッシュはBASFの経営陣の一員としてナチスの方針に引きずられていく状況に心を病み、彼もまた失意の中で他界する。(1940年ハイデルベルグ)

 話を戻そう。植物は基本的に窒素飢餓状態にあるため、これを捨てる事はせず有効に再利用するシステムを作り上げている。植物の老化した組織では機能していたタンパク質や核酸などの含窒素生体高分子は、役目を果たした後に分解され、篩管を介して若い組織に輸送され再利用されている。この組織間の窒素輸送は窒素転流と呼ばれているのだが、篩管を流れる窒素の主な形態はグルタミンとアスパラギンである。つまり老化した組織では、グルタミンやアスパラギンの生合成、特にグルタミンの生合成が活発に行われているわけである。

 一見話が飛ぶように思われるかもしれないが、光合成において主役を演じているのはリブロース-1,5-ビスリン酸カルボキシラーゼ(ルビスコ)と呼ばれる幾分以上に奇妙な酵素である。このルビスコ、ラフな言い方で問題が残ることは承知しているが、二酸化炭素と酸素をうまく区別できず反応部位へ取り込むため、二酸化炭素を取り込んだときはカルボキシラーゼとして働くが、酸素を取り込んだ場合はオキシゲナーゼとして働いてしまう。この現象の意義については場を改めて述べる予定である。さらに、ルビスコは、酵素としては異常とも云えるほど基質回転速度が低い。従って、植物は大量の酵素を必要とする事になり、植物の葉中に存在するタンパク質の3割ほどをルビスコが占める。その量の多さ故に、時としてビスコを窒素のシンクとして見なす場合もあるほどである。

 このルビスコは葉っぱの老化に伴い分解を受け、その窒素部分は師管を通って新葉や種子へと転流されるのだが、この時窒素はグルタミンやアスパラギンの形を取っている。ではルビスコというタンパク質のアミノ酸組成がグルタミンやアスパラギンに偏っているかと言えばそんな事はない。下にアラビドプシスのルビスコを構成するスモールサブユニットとラージサブユニットのアミノ酸組成を示す。

 Ribulose bisphosphate carboxylase small chain 1A  180 aa

Met 6  Ala 14  Ser 15  Leu 11  Thr 11  Val 10  Pro 12  Gln 5  Phe 10  Asn 9  Gly 11  Lys 12  Arg 7  Asp 7  Ile 10  Trp 4  Tyr 8   Glu 11  Cys 5  His 2

 Ribulose-bisphosphate carboxylase large chain  479 aa

Met 8  Ala 43  Ser 19  Leu 41  Thr 33  Val 33  Pro 24  Gln12  Phe 22  Asn 15  Gly 47  Lys 24  Arg 27  Asp 26  Ile 21  Trp 8  Tyr 17  Glu 35  Cys 9  His 15

 見ての通り、これらのタンパク質のアミノ酸組成がGlnとAsnに偏っているわけではない。葉っぱの中で働いている他の酵素やタンパク質についても状況は同じである。では窒素転流において何が起こっているのか。

 面白いといえば面白いのだが、アミノ酸の分解と再利用という問題には現代文明の持つ病的側面を露骨に見る事ができる。Buchanan, Bob B. /Gruissem, Wilhelm /Jones, Russell L.等による1,200ページを超える大著―「Biochemistry & Molecular Biology of Plant」やHans Walter Heldt(金井龍二訳)の「植物生化学」などを参照しようとしたのだが、窒素の同化に続くアミノ酸合成、アミノ酸からのタンパク質の合成に関しては詳しく書いてあるものの、その分解・リサイクルについて包括的な視点から書いたパートは存在しない。作って作る事には精力を傾けるにもかかわらず、使った後の処理や廃棄を徹底的に軽視してきた我々の文明の病理を端的に示しているように見えてしまう。アミノ酸の分解に関してはリグニンやアルカロイドの生合成の部分に少しだけ書いてあるのだが、それはアミノ酸の分解という位置付けではなくリグニンやアルカロイド生合成の初発反応という位置付けである。作る事が大事であり壊す部分は微生物に任せて放置ということであろう。

 一般的な生化学の教科書にアミノ酸分解についての一節が存在する。しかしながら、そこにおける記述は動物(おおむねヒト)における分解系路であり、アミノ酸における炭素鎖からTCA回路へ向かう系路についての説明が中心となる。この分解系で発生するアミノ基由来のアンモニアについては、アンモニアの毒性故にいわゆる尿素回路を使って無毒な尿素に変換した後、体外へ排泄するという。書籍によっては、窒素の排泄形態と動物の水利用の自由度を関連付けて記述している場合も存在する。

 だが、植物にとってアンモニアのみならず尿素回路の生産物である尿素も重要な窒素原である。この事実を中心に置いたアミノ酸分解系の解釈はなされていない。どうやら植物が行うアミノ酸分解については、自ら手を下して纏めるしか仕方がないようだ。という事で、植物に存在するアミノ酸から先の代謝を列挙することにする。

1. リアーゼによる脱アミノ反応

 フェニルアラニンアンモニアリアーゼ(PAL)、チロシンアンモニアリアーゼ(TAL)、あるいはアスパラギン酸アンモニアリアーゼなどに代表されるEC第4群に属する酵素群で触媒される反応で、アンモニアを脱離しながら二重結合を形成する。通常はリグニンやリグナンなどフェニルプロパノイド生合成の初発反応として記述される場合が多く、莫大な量のPheやTyrが分解を受ける。しかし、ここで脱離するアンモニアはグルタミン酸やグルタミンの生合成に再利用されているようだ。

2.  アミノ酸デカルボキシラーゼによる脱炭酸反応

 アミノ酸のカルボキシル基を脱炭酸して一級アミンを生成する反応である。通常は動物や微生物においてチラミン、ドパミン、ヒスタミン、トリプタミン、γ-アミノ酪酸、など種々の活性を持つアミン類を生成する反応として記述される事が多い。しかしながら植物においても同じ代謝系が存在するだけでなく、フェニルアラニン、チロシン、トリプトファン、オルニチンやリジンに由来するアルカロイド群生合成の初発反応として認識されている。余り問題にされる事はないのだが、アミノ酸デカルボキシラーゼによる脱炭酸反応で生成するこれらの1級アミン類は、脱アミノ反応を受けてアルデヒドへと変換される。この変換にはα-ケトグルタル酸がアミノ基の受容体となる反応と、酸化的に脱アミノを受けアルデヒドとアンモニアに変換される反応があるのだが、植物は酸化的脱アミノ反応の方を使っているようだ。モノアミンオキシダーゼあるいはジアミンオキシダーゼが触媒するこの反応においても、生成したアンモニアはグルタミン酸やグルタミンなどの生合成に使われるため、窒素が無駄に捨てられるわけではない。

3.  グルタミン酸デヒドロゲナーゼによる酸化的脱アミノ反応

 NAD(P)+存在下にグルタミン酸を基質として、α-ケトグルタル酸とアンモニアとNAD(P)H2を生産する反応である。植物においてはミトコンドリアや維管束鞘に偏在し、α-ケトグルタル酸が不足した場合の供給反応であると予想されており、いわゆるグルタミン酸分解反応とは考えられていない。

5. アスパラギン、グルタミンのアミド部分の加水分解

 アスパラギン、グルタミンのアミド部分を加水分解してアスパラギン酸あるいはグルタミン酸に導き、それらの代謝系に乗せる反応である。

4. トランスアミナーゼによるアミノ基転移反応

 アミノ酸とα-ケト酸との間で起こるアミノ基転移反応である。この反応はアミノ酸の分解であるのか生合成であるのか判断が難しい。少なくとも、ルビスコを始めとしたタンパク質がタンパク質を構成アミノ酸まで分解された後、グルタミンあるいはアスパラギンとして集約され師管を通って転流する場合、集約を担うのがこの反応である。とはいえ、TCA回路からスピンアウトしたα-ケトグルタル酸に始まる膨大なアミノ酸や核酸類の生合成を担っているのもこの反応である。窒素転流という観点からみれば、α-ケトグルタル酸あるいはオギザロ酢酸がアミノ基を受け取るα-ケト酸として重要視される。植物細胞では4種類のアイソザイム(細胞質型,ミトコンドリア型,プラスチド型,ペルオキシソーム型)の存在が知られている。この反応はアンモニアを生成する反応ではないが、アミノ基を再利用しやすい形に変えて行くという意味で記載した.

 一寸ばかり複雑かもしれないが、要するに植物は常に不足しがちな窒素を無駄なく回収し再利用する窒素サルベージ系を持っていると考えて良い。いやこれは私の立場からの認識であり、今まではアミノ酸の分解反応、相互変換反応として記述されていたものである。よく似た窒素回収システムが核酸分解においても機能しているのだが、複雑になるのでここでは触れない。

 植物は窒素を無駄なく回収し再利用するスキームを持つという視座から見たとき、このスキームからスピンアウトしていく窒素がモルヒネ生合成経路には存在する。モルヒネ生合成系の前半部に存在するドパミンと3,4-ジヒドロキシフェニルアセトアルデヒドとの反応である。有機化学の基礎的知識として、1級アミンはアルデヒド類とすぐに反応してシッフ塩基を与えるし、2級アミンはイミニウムカチオンを与える。この場合はドパミンと3,4-ジヒドロキシフェニルアセトアルデヒドがすぐに反応してシッフ塩基を形成した後、キノリン環を形成して (S)-Norcoclaurine を形成するのだが、シッフ塩基を生成する時点で、窒素のサルベ-ジシステムからスピンアウトしてしまったと見るわけである。この場合、細胞内においてドパミンがアミンオキシダーゼの基質であり3,4-ジジヒドロキシフェニルアセトアルデヒドが生成物である。つまり両化合物は極めて近接した位置で共存している。その条件下においては、有機化学の常識に従えば両化合物が反応しないはずはない。

 さて、前述したように植物は基本的には常に窒素不足の状況にあると考えて良い。少しだけ一般化した話だが、ある植物が何故アルカロイドを作るのかという疑問に対して、そのアルカロイドの生理活性を根拠とする時系列錯誤的な説明だけではなく、アルカロイドを窒素の老廃物、あるいは何らかの解毒作用の結果であるとする説があった。アルカロイドの存在意義を説明する根拠とするには余りに多様すぎる生理活性に対する逡巡が、アルカロイドは窒素廃棄物というごく単純な説をもたらしたように見える。しかし、アルカロイドの含有量が次第に増加していくのでなく季節によって大きく変動するだけでなく、窒素飢餓状態にある植物が窒素を捨てるはずがないとする常識から、この考え方は殆ど見捨てられた状態にある。しかし、この廃棄物説は捨て去るには惜しい仮説である。私の視座から見ると結果的に捨てていると判断せざるを得ない部分があるからだ。なかなか理解されないかもしれないが続けることにする。

 私は、アルカロイドは植物の窒素のサルベージ系路からスピンアウトした化合物であると捉えている。先祖返りの窒素廃棄物説に少しだけ似ているが、単なる廃棄物として捉えているわけではない。植物は基本的に窒素飢餓状態にあるが故に、窒素を捨てたくはない生物である。従って、長い歴史の中で窒素を回収し再利用するサルベージ系路を発達させてきた。にもかかわらず、そのサルベージ系の中で生成したアミンとアルデヒドが意図に反して勝手に反応してしまう事で、そのスキームからのスピンアウトが起こってしまったと理解する。言い換えれば、アルカロイドは植物の意図しない窒素廃棄物であるという事になる。「意図しない」という言葉の中に、捨てたくない植物側の事情が反映していると受け取って欲しい。

 では、このアルカロイドは窒素サルベージ系からのスピンアウト物質説が、その他のアルカロイドに対しても成立するかどうかを検証しよう。これからの議論においては、真性アルカロイド、プソイドアルカロイド、あるいは不完全アルカロイドなどという分類には拘らず、それらの生合成において、植物の意図しない窒素のスピンアウトが含まれているかどうかが問題である。

 リジンを起源とするアルカロイド群

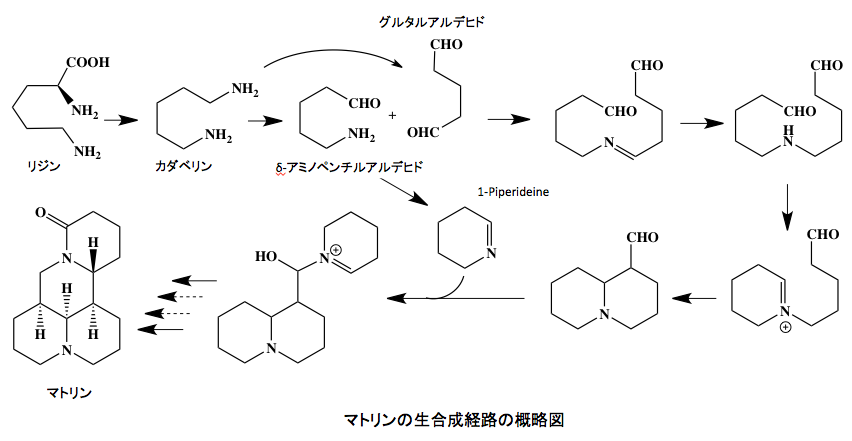
 塩基性アミノ酸であるリジンは脱炭酸を受けてカダベリン(Cadaverine)と呼ばれるジアミンに変換される。長年慣用名で慣れてきた人々はカダベリンで違和感はないかもしれないが、IUPAC命名法に従ってペンタン-1,5-ジアミンと書いた方が分かりやすいかもしれない。そして代謝はカダベリンで止まるのではなく、ジアミンオキシダーゼの作用で酸化的に脱アミノされてδ-アミノペンチルアルデヒドを生成する。植物としてはもう一つの1級アミンも酸化的に脱アミノしてグルタルアルデヒド、IUPAC命名法では 1,5-ペンタンジアールヘと変換し、この2段階の反応で生成するアンモニアをグルタミンへと変換して窒素転流系に乗せるのが望ましい。しかし、ことはそう都合良く進むわけではない。

 リジンが脱炭酸を受けカダベリン(Cadaverine)と呼ばれるジアミンに変換される。ここまでは問題はない。そしてカダベリンはジアミンオキシダーゼの作用で酸化的に脱アミノされてδ-アミノペンチルアルデヒドを生成する。δ-アミノペンチルアルデヒドには1級アミノ基とアルデヒド基が存在する。化学反応は反応に関与する官能基が出会うというより衝突して起こるのだが、δ-アミノペンチルアルデヒドは4個の炭素から成るメチレン鎖の両端に反応しやすいアミノ基とアルデヒド基が存在する上に、反応生成物が安定な6員環になるという環化反応を起こすには最適な形をしているのである。従って、δ-アミノペンチルアルデヒドは触媒無しに直ぐに反応して1-Piperideine(2,3,4,5,-Tetrahydropyridine)に変化してしまう。こうなると、5位にあった窒素原子は、植物が構築している窒素サルベージ系路からスピンアウトしてしまうわけである。

 話はそれだけでは済まない。δ-アミノペンチルアルデヒドはさらに酸化を受けてアンモニアを窒素サルベージ系路へ流し、グルタルアルデヒド(1,5-ペンタンジアール)を形成するのだが、この反応性の高いジアルデヒドは原料であるδ-アミノペンチルアルデヒドのアミノ基とシッフ塩基を形成した後、C=N二重結合の還元に続く閉環反応を受けてキノリチジン環をもつアルデヒドをあたえる。そしてこのアルデヒドが先に作られていた1-Piperideineによる付加反応を受けた後、幾つかの段階の反応を経てマトリン(Matrine)となる。

 全体を通してみると3分子のリジンの6個のアミノ基の中で、4個がアンモニアとして回収され、2個が望ましくないアミノカルボニル反応によりサルベージ経路から抜け落ちた事になる。マトリンは苦い。舐めると頭がクラクラするほど苦いがゆえに、これを含むマメ科植物にはクララという名が付いたという。クララが苦いマトリンを作り生存に有利になったなどと云う説明は後付けの説明に過ぎず、クララの体内でアルデヒドとアミンが自動的に反応したがゆえに窒素のサルベージ系路からスピンアウトし、クララにとっても思わざる廃棄物ができてしまったと考えるのが理性的であろう。

 蛇足だが、この苦いクララを食草とするオオルリシジミは、クララの自生地が野焼きの減少と草地改良の拡大によって激減したがゆえに絶滅危惧種になってしまった。オオルリシジミにしてみれば、苦さを克服してクララを食草としたにもかかわらず、クララ自体が激減したのでは立つ瀬がないだろう。尤も、この蝶がマトリンを苦く感じていると断定するのは早とちりかもしれない。ウリ科植物に含まれるヒトにとっては苦み成分であるククルビタシンをウリハムシの仲間は好んで食べる事が知られている。蓼食う虫も好き好きという事で、虫の感覚については棚上げにしておくのが良さそうだ。

 マメ科植物であるルピナスの仲間は、リジンが脱炭酸を受けて生成したカダベリンからキノリチジンアルカロイド類である有毒な17-オクソスパルテイン、ルパニンを通って13-(2-メチルクロトノイル)オキシルパニンなどを生合成する。このキノリチジンアルカロイド生合成の初発反応も興味深い。3分子のカダベリンには6個のアミノ基が存在するのだが、そのうち4個のアミノ基はピルビン酸へと移されてアラニンとして再利用されるのだが、残った2つのアミノ基が再利用系から外れて17-オクソスパルテインの縮合環内に取り込まれている。

 いくつかスピンアウトの例を続けよう。

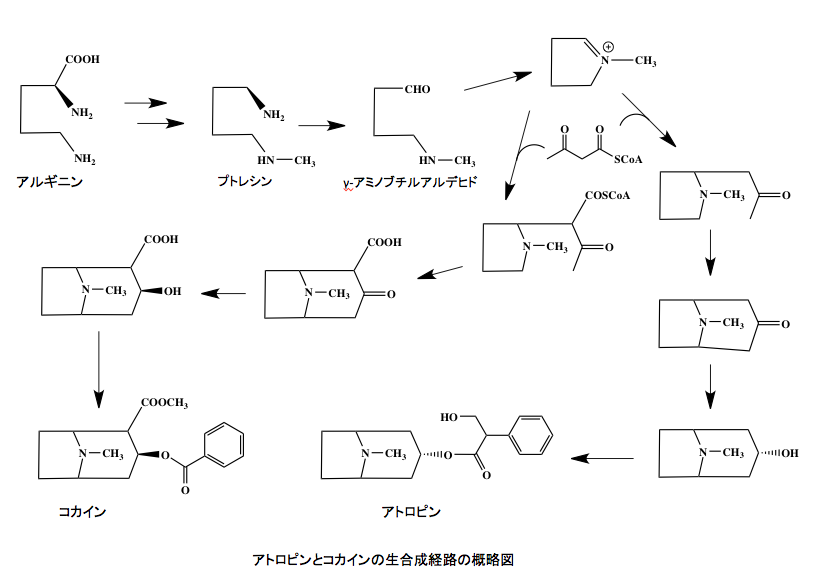
 アルギニンを出発物質とするアルカロイドも多数存在する。これらのアルカロイドは、リジン由来のアルカロイドと同じく、アルギニンが脱炭酸されたプトレッシンを通るのだが、多くの場合プトレッシンの片側のアミノ基はメチル化を受ける。生成物はであるN-メチルプトレッシンは1級アミンオキシダーゼの触媒下にアンモニアを放出して4-アミノメチルブタナールへと酸化されると同時に、生成したアンモニアは窒素サルベージ系へと回収される。そこまでは良いのだが、リジン由来のδ-アミノペンチルアルデヒドの場合と同じく、N-メチルプトレッシンの酸化生成物である4-アミノメチルブタナールにおいては、1級アミン以上に求核性の高い2級アミノ基がアルデヒド基のγ位に存在するため、すぐに閉環反応を起こして1-メチルピロリ二ウムを生成する。窒素サルベージ系からのスピンアウトをメチル化が起こった時点と考えるか、1-メチルピロリ二ウムの生成時点と考えるかは人によって違うかもしれないが、少なくとも1個の窒素原子がスピンアウトしてしまうと考えられる。

 1-メチルピロリ二ウムは窒素原子上に正電荷を持つため、2位の炭素が求核置換を受けやすくなっているため、色々な生体成分が2位の炭素に結合後、幾つかの反応を経てニコチン、ヒグリン、トロピノンを通って、アトロピンやスコポラミン、あるいはクスコヒグリン、そして重要な麻薬であるコカインなど、種々のアルカロイドへの代謝系が連なっている。我々は、生産されたアトロピン、スコポラミン、クスコヒグリン、そしてコカインなどの様々な生理活性に幻惑され、それらの活性をもってアルカロイドの存在意義を考えようとしてきたのだが、それらは窒素のサルベージ系路から思いがけなく外れて生成した4-アミノメチルブタナールあるいは1-メチルピロリ二ウムに端を発する新たな代謝系産物と考えることにより、合理的な説明が可能になると思う。

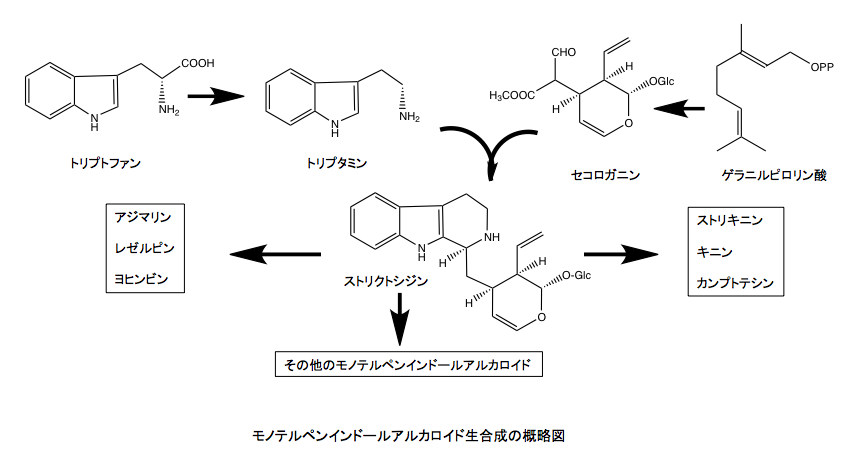
 アルカロイドの中でトリプトファンに由来するアルカロイド群もまた、非常に興味深い生理活性を持つものが多い。特にモノテルペンであるセコロガニンとトリプタミンから生合成されるアジュマリン、レゼルピン、ヨヒンビンなどがよく知られているのだが、これらの生合成もトリプトファンが脱炭酸を受けて生成するトリプタミンがセコロガニンのアルデヒド基とシッフ塩基を形成するところに端を発している。本来ならトリプタミンをアミンオキシダーゼで酸化し、生成物であるアンモニアをサルベージ系に乗せるのが植物にとっては好ましいであろうにも拘わらず、トリプタミンのアミノ基がセコロガニンのアルデヒド基と望ましくない脱水縮合を起しシッフ塩基を形成してしまっている。トリプトファンに由来するが、インドール環ではなくキノリン骨格を持つストリキニンやキニン、キニジンの場合も、上記の議論は成立する。

 これ以上の議論はしない。読者が自ら興味を持つアルカロイドについて、アルカロイドは窒素サルベージ系からスピンアウトした物質であるとするこのアルカロイドスピンアウト仮説が成立するかどうかを検証してもらえば良い。


結論

 結論として纏めよう。先に述べたように、筆者にとって「なぜ植物はアルカロイドを作るのか」という疑問は、長い間全く説明のつかない難問であった。アルカロイドだけではなく他の多くの生理活性物質に対して、生理活性を原因として語られるアドホックな説明は、掃いて捨てても捨てきれないほどあった。ただアルカロイドについては、いくぶん控えめに書いてあるものが多い。何しろアルカロイドという物質群は「毒と薬の宝庫」である。化合物の持つ多様な活性から意義を説明する理由付けの材料には事欠かないように見える。しかしながら、アルカロイドの活性を示す対象生物が、周辺に棲息する動物・昆虫・微生物・他の植物だけではなく、生産する植物とあまり利害関係のなさそうなヒトまでも含まれていたことがネックになっていたようだ。(動物の一員であるヒトをワザワザ別立てで記述することに幾らかの心理的抵抗はあるが、普通の人にとっては動物とヒトは違うものだろう。分かりやすくするために、別物として記述する)

 ケシがモルヒネをつくる目的を、ホモサピエンスを桃源郷に誘うことに求めるのは無理だろう。マタタビがアクチニジンを、ネコを酩酊させるために作るはずもない。ネコが酩酊したらマタタビに何の利益があるのだろう?あるアルカロイドに対して、生合成された後に顕在化する生理活性をもって、そのアルカロイドが作られる理由とするアドホックなスキームは使いづらかったようだ。つまり、生理活性に存在意義を求めるこの論法が、一部の二次代謝産物に対し辛うじて機能しているように見えるにしても、アルカロイドに対する説明に於いては脆くも破綻していたのである。

 筆者は、生物学において起こった事象の時間的な前後関係を重視する歴史生物学という新たな枠組みを提唱している。この枠組みにおいては、生物界で起こった事象の前後関係(歴史性)を重視する。モルヒネでも他のアルカロイドでも、あるいは他の二次代謝産物であっても、ある生物が他の生物への毒作用(薬理作用)を意図して生合成するはずはない。何らかの必然性によって、アルカロイドが、あるいは二次代謝物質が生合成される。その後に、その代謝物質の他の生物に対する薬(毒)作用が発現するという時系列での話でなければならない。つまり、アルカロイドあるいは他の二次代謝物質が生合成される理由は、それらが作られる生合成経路の中になければならない。それが、いろいろな代謝系を理解するに当たって、歴史生物学が要請する最低限の条件となる。

 さらに、植物という生き物が常に窒素飢餓状態におかれているという認識である。移動する事がかなわず、肥料成分の摂取を根圏に限定されている植物には、窒素を回収し再利用するサルベージ系路が発達している。α-ケトグルタル酸、グルタミン酸、グルタミンを主要な成分とするこの窒素サルベージ系については、窒素サルベージ系という観点から言及される事は殆どなかった。しかし、アミノ基転移と、炭素鎖から脱離したアンモニアを再利用が組み合わされたこのサルベージ系こそが、植物の生活環を支えている事は間違いない。植物は窒素を無駄にする事は極力避ける生き方をしているのである。

 上に書いた二つの条件を前提にモルヒネの生合成系を眺めると、チロシンに由来するドパミンとその酸化生成物である3,4-ジジヒドロキシフェニルアセトアルデヒドとの反応が自発的に起こる反応であるが故に、植物の意図に反して窒素再利用系からスピンアウトしていく望ましくない反応である事は自明であろう。生成したシッフ塩基は、その高い反応性故に周囲に存在する酵素群の作用を受け、様々な修飾を受け続けるのである。その途中に出現したモルヒネという化合物は、最終産物ではない。これを最終産物であると認識するのは、その生理活性に幻惑されモルヒネ生合成系などと命名して現象を理解しようとした研究者の錯誤である。構造主義の考えに従えば、恣意的分節がもたらした硬直した認識であると言っても良いだろう。

 現実は、モルヒネ生合成系に続いてモルヒネの分解系が続いているのである。植物の生長と老化に伴い、モルヒネ含量が増減するのはおかしいとしてアルカロイド窒素廃棄物説を一蹴した研究者の方が間違っていたのである。二酸化炭素と水、そしてアンモニアから開始された代謝系は、種々の複雑な化合物となって植物の命を支えた後、また二酸化炭素と水、そしてアンモニアに戻って行く。研究者達はその一部を恣意的に切り取って空想をもてあそぶ『臆断の虜囚』になっていたと考える。そう考えれば、モルヒネを通って進んで行く分解系さえも窒素サルベージ系のバイパスであると考えて良いのかもしれない。

 こうした所論をもって他のアルカロイドの生合成系を精査すると、どの場合においても、生合成系の始めの段階に同じようなアミノカルボニル反応が存在し、その段階からの窒素サルベージ系からのスピンアウト現象が存在する。とすれば、植物にとってのアルカロイドは、「窒素サルベージ系からのスピンアウト生成物」あるいは「窒素サルベージバイパスにおける中間体」として位置付けられるだろう

 さらに重要な事は、いままで生理活性を示さないが故に黙殺されてきた極めて多くの代謝中間体に、その存在意義を付与する事ができる。全ての中間代謝物は、生理活性の有無に拘わらず、それぞれが重要なレゾンデートル「存在意義」を持っていたのである。

 ああ、疲れた。馬鹿馬鹿しいコロナ騒ぎの中で学問的な情熱を持ち続けるのは結構難しい。でも、馬鹿馬鹿しいコロナ騒ぎに異論をもち細々と書き続けるのであれば、植物の代謝に伴う生産物に関するアドホック極まる説明群に対しても批判をし続けなければならないと考えた。現役生活を青臭い書生論によって打ち切った著者にとっての残り火みたいなものである。

カテゴリー: ケシは何故「モルヒネ」を作るのか?, 歴史生物学 | タグ: , , | ケシは何故「モルヒネ」を作るのか? はコメントを受け付けていません

真理教は大嫌い

 何事にせよ、ある個人が彼・彼女の知り得ない世界があることを知らずに、これが正しい、これが一番良いと思い込むことはよくある事である。事の正否に関わらず、まあそこがその人の限界だと思えばよいだけの話だ。こう書くと偉そうに何を言うと怒る人がいるとは思うが、それは誤解が原因である。私にだって分からないことは山ほどある。何しろ算数はわかるが数学はわからない。絵画が分からない。焼き物もわからない。プログラミングも分からない、量子論も高級車の良ささえも分からない。日本酒の善し悪しもワインの善し悪しもほとんど分からない。ワインといえば赤玉ポートワインが一番美味しいという人達とさほど変わらないだろう。本音を言えば、一寸フルーティな石狩ワインの方が良いなと思う程度。詰まる所、分からないことがあることを自認し、それらについて私以上に識別・理解できる人がいることに気付いているかどうかの問題である。但し、ここで言う正否・善し悪しは、通常世間で認められてものであって、個人的好き嫌いとは別世界のものである。

 個人的好き嫌いは、その人の個性の一部である。私なんていわゆる高級なフルコース料理を美味しいと感じた事はほとんどない。何しろ、牛肉を食べると腹具合がおかしくなる。当然の話だが、吉野家へは付き合いで行ったほんの数回程度、バーベキューや焼き肉など親の敵みたいなものだ。つきあいで参加せざるを得ない時は、隅っこで半焼けの野菜をついばんでいる鶏と変わる所はない。甲殻類も性に合わない。タラバガニを食べたのも数回程度かな。海老天は何とか大丈夫だが、ごぼう天があれば間違いなくそちらを選ぶ。巻き貝も苦手である。一度、浜松だったかな、接待の席で巻き貝らしいやつの刺し身を食べ、その後二日程和式トイレに隠ったことがある。以来、サザエもアワビも食べていない。あれ、アワビは巻き貝だったかな。確かそうだったと記憶している。

 そういう個人的なことはどうでも良いとして、何が正しいのかと問われた場合、絶対的な自信を持ってこれが正しいなどと言えるはずもないことは分かっているつもりだ。だが世間には、知識に欠け、問題の本質を認識も理解も出来ていないにも関わらず、自分の意見や解釈を他人に押し付ける人々が沢山存在する。そんな人が嫌いだというだけである。

 これが嗜好品の話であればまだ何とか許せるのだがと書きかけて、そうでもないことに気が付いた。禁煙真理教、禁酒真理教、禁鯨真理教、禁豚真理教など、近頃とみに自らの嗜好を押し付けたり、自国の宗教的な慣習を押し付けたりする例が増えてきた。禁炭真理教、禁油真理教、禁肉真理教、数え上げれば切りがない。何でこんなに窮屈な社会になってきたのだろう。

 そこでまた新型コロナ感染症に戻るのだが、ここにも真理教信者が溢れている。コロナウィルスいない真理教、新型コロナ怖い怖い真理教と新型コロナは軽い風邪真理教、マスク真理教と反マスク真理教、コロナワクチン愛好真理教と反ワクチン真理教、もういいかげんにしてくれと言いたい。このワクチンが好ましくない事は間違いないだろう。

 https://ikenori.com/pdf/list_of_ae_pfizer.pdf

 今我々に必要な事は、何度も書くようだが有害なスパイクタンパク質を解毒する方法を見いだす事である。それはワクチンを接種した人達だけではなく、接種していない人達にとっても不可欠なことである。いま、打ったか打ってないかで人々を分断する政策を受け入れるのはこの政策を進めようとしているグループの思うつぼに嵌まってしまう。昔から言われている事だが、予防医学という分野は政治と結びついた時にとんでもない方向に走ってしまう性格を持っている。変な健康指向がいつの間にかそれを助長してきたようだ。

 大事な話だが、現在パンデミックが起こった場合に、その対応をWHOの権限下に置こうとする議論が進んでいる。現在の製薬会社の意向のみに従うWHOをそこまで信頼できるのだろうか。国際条約の形で決まるとするとすれば、日本では条約での決定は憲法の上位にくる。例えば、WHOがワクチンの強制接種を決めれば我々は無条件に従わなければならなくなるのである。世界中でこれに反対しているのはプーチンの率いるロシア1国だけらしい。確かアメリカは条約での決定より国内法を上に置いていると聞いた事がある。それなら賛成しても構わないと言う判断もありか。(アメリカの法制度のついての記述は確認が必要である。年寄りの記憶ほど信頼できないものはない・・・。自戒です。今日は人と話していてフォークリフトと言う単語が出てこなかった。)

カテゴリー: 未分類 | 真理教は大嫌い はコメントを受け付けていません

花の色素に関する考察

 以前に書いて公開していたはずのものだが、残っていないようなので再度公開します。4月1日の公開分ですので一寸怪しいかもしれないな。

 昔といってもそう遠い昔ではない。植物は顕花植物と隠花植物に分けられていた。この分類はいまではなくなったらしく、花をつける植物は裸子植物と被子植物を含め種子植物として分類されるそうである。とはいえ、裸子植物の胞子葉をみてこれを花だと感じるヒトは、少なからず、いや過剰に植物分類学に毒されたヒトであろう。

ゼンマイの胞子葉

 我々が普通に花らしく感じる花は被子植物の花である。そして、我々が美しいと感じる花を咲かせる植物は、確かに多数存在する。ではなぜ、花は美しく進化したか。この疑問は果てしなく深い。ある花を、ヒトが美しいと感じるのは何故なのかと考え始めると、花の話に入る前に美とは何かというヒトの認識論に陥ってしまう。科学哲学を志そうとは思ったものの、本物の哲学者になる決心はまだついていないので、そこまで遡るのは止めることにしよう。
 とりあえず、花はヒトにとって美しく感じられる色と形へと進化してきたという、多くの例外を含む言説があることだけは認めておこう。(スマトラオオコンニャク、ラフレシア、ザゼンソウ或いはマムシ草などの花を見て、あなたが美しい色と形であると感じるかどうかは分からない)。

マムシグサの花

  では、花はなぜ美しいのか、あるいは美しくなる方向で進化したのか?この疑問に対して、世の中には虫によって花粉を運んでもらう虫媒花の話へとさり気なく誘い(いざない)、虫と花との共進化へと話を絞り込む先生・研究者などが極めて多い。某教科書会社の教科書によると「花がきれいなのはなぜ?」という単元に、「花粉を昆虫に運んでもらって受粉する花を、虫媒花 といいます。虫媒花は、虫をよぶための大きく色あざやかな花びらとあまい香り、虫たちへの報酬としておいしい蜜や花粉の一部を用意しています。虫媒花は、風まかせの風媒花より効率よく花粉が運ばれ、受粉の確率が高くなり、確実に種子をつくることができます。」と書いてある。


 この説明において、美しい・きれいという表現を使わずに「大きく色あざやかな」としたのは、ムシにとって美しいという概念は使えるのかという質問から逃れるためのずる賢い選択であると受け取れない事もない。しかしながら、大きく色あざやかと書いても何も変わらない。大きく色あざやかに感じる主体はムシであろうかヒトであろうか。そして次に使われている「あまい香り」も「美味しい蜜や花粉の一部」というフレーズも、感じる主体を曖昧にすることで成立している。


 著者はホモサピエンスに属する1個体として、蜜は場合によっては美味しいことを認めるが、主食にするようなものではない。10年ほど前に血糖値が高くなり、それ以来食べていないような気がする。花粉については美味しいかどうか判断できるほどまとまった量を食べたことがない。健康食品的扱いで売られている花粉があるようだが、大多数の人も食べたことはなかろうと推測する。そうすると、さきの虫媒花の定義は植物がムシたちの嗜好を了解した上で、「報酬」として蜜と花粉を用意したという話になる。しかし、花で分泌する蜜だけ吸って花粉を運ばない虫も多数存在する。さらに、ムシが人にとって甘い香りに引かれることがあるのを認めないわけではないが、同時に人が忌み嫌う臭いに引かれるムシも多数存在する。


 私見だが、上記の説明は、地球上での虫媒するムシの出現と虫媒花の出現はどちらが早いのか、植物による蜜の分泌と蜜を好むムシの出現はどちらが先なのか、ムシは風媒花の花粉を食べても良いではないか、花外蜜腺の存在をどう説明するか、風媒花の植物でも十分に繁栄してるのは何故か、イネ科植物は虫媒花から風媒花へと進化した事実をどう説明するか、などなど基礎的な議論を無視した所に成立する何とも理解不能な詭弁である。子供相手とはいえ教科書である。いい加減に書いたとは思わないが、これら教科書の執筆者・監修者がかなり高名な方々である事を考えると、ちょっと杜撰、いや無責任すぎるのではないだろうか。さらに、一般人の検索を意識して書いてあるウィキペディアにおいても、「虫を誘引するために美しく目立つ姿や強い香りを放つものが多い。また、蜜を出すのも虫を誘引するための適応と考えられる。」と書かれている。


 どうやら、ムシとヒトは審美眼と味覚、さらに嗅覚においていくつかの例外を除けば似た判断をしているというのが世の常識であるらしい。ムシとヒト、確かに遺伝子レベルではかなりな相同性を持つ。ムシで足の発生を誘導する遺伝子とヒトの手足を誘導するマスター遺伝子は相同であるし、ムシの目を誘導する遺伝子と人の目を誘導するマスター遺伝子も相同である。(これはこれで、生物学における相似と相同の概念に影響を与える悩ましい現象である)そしてDNAからRNAを通ってタンパク質を作る情報伝達メカニズムもほぼ同じである。

 しかしながら、一部のムシは我々の目では見ることのできない紫外線まで見ることができるようだ。ヒトの目ではモンシロチョウの雌雄を迅速に見分けることは難しいが、モンシロチョウの雄は我々にとっては紫外領域にあたる光の反射特性によって、瞬時に雌雄の判別をしているという。大まかに言えば、昆虫の可視域はヒトの可視域に比べてでは、100 nm程短波長側にずれているそうだ。我々にとって真紅のバラは、昆虫にとっては漆黒のバラであるかも知れない。そのあたりはムシに聞いてみないとよく分からない。とにかく、見ることのできる波長範囲が異なる生き物に、審美眼が同じといわれても納得できないとモンシロチョウは言うかもしれない。


 議論になっているいろいろな事項の、地球上に現れた時期についての議論は一旦横に置くとして、花、特に虫媒花の説明に関しては、あまりにも擬人化が過ぎるのではなかろうか。私だって擬人化できないわけではない。例えば、虫がつくという表現があるが、このムシとは読者が容易に妄想できるムシである。花にはもちろん“花”という暗喩がある。このムシ達が、甘い香りと美しく色鮮やかな花に惹かれて集まるのである。花は甘い蜜と花粉のパンをムシたちへの報酬として用意している。ときには有毒な花もある、ムシを捕まえて食べてしまう花もあるとすれば、いやいや花もムシもネオン煌めく夜の巷に棲息しているようだ。昔に戻って、植物採集を再開したい気分になってしまうが、食虫植物の捕獲対象になる可能性の方が高そうだ。歴史生物学というテーマで生真面目にライフワークを展開しているつもりだが、お花畑=夜の街論になってしまったようだ。

 原点に戻ろう。生物的現象を歴史的視座から見るという原点に立ち戻ったとき、複数の現象はどのような順番で出現したのかを問わねばならない。コケ植物やシダ植物を観れば植物が初めて花という器官をつくったとき、それが風媒花、いや多分水媒花であったことは間違いないであろう。しかし、水媒あるいは風媒花から虫媒花への進化が起こるに際して、花が出し始めたかもしれない香りを感じる能力を持ち、かつその発生源に蜜と花粉があることを知っていた昆虫がいたのであろうか。前適応?もちろんそれに類した能力を虫が持っていたであろうことは推測できる。しかし、そうした性癖を持つ昆虫を引き寄せ花粉の運搬をさせようとする意図をもって、植物が香りの成分を作り花弁に色を持たせ、少々食べられても良い量の花粉を造ったとする説明は、わかりやすい嘘だと思う。前適応と言う万能の言葉で安易に議論を終わらせる、それは嘘つきの知的怠慢を意味している。


 子供の頃に怪傑黒頭巾(だったと思う?紫だったかな)というテレビ番組が放送されていた。捕方に追われ屋根の上を逃げていた黒頭巾が追い詰められてくると、必ずそこの屋根の下にアオという名の馬が待っていたように記憶している。あんな馬が欲しいと思ったものだが、それはドラマのなかの約束事である。あれは馬が待っていたのだろうか、それとも馬のいるところに逃げて行ったのだろうか?

 植物が花粉や蜜をつくったからといって、それを運ぶ昆虫が都合良く待っているわけはあるまい。花が大きく色鮮やかでかつ強い香りを持ち、蜜をも分泌するようになったのは、花を咲かせる植物の側にそれなりの事情があったに違いない。ムシが寄ってきたのは、花ができた後の話である。2つの生物間のそれぞれの事情がどこかで交錯し、共進化と呼ばれる現象が開始されたことを否定する気はないが、植物側が昆虫が起こすであろう行動を予測して始まった事ではないだろう。もちろん、昆虫側も植物はこんな物質群を造るだろうと予測して、待っていたとは思えない。少し前までは昆虫の行動を、本能と学習という分かったような分からないような概念を使って安易に説明していたが、それら起源を厳密に問われると自己撞着に陥ってしまう。現在の時点で昆虫側の話は私には出来ない。昆虫を抜きにして、植物が何故色鮮やかな花を創ってきたのかを考えてみたい。


 そこで花を創った植物側の事情とは何か。花の色とは何かという疑問である?花の色を決めているだけでなく、植物体内に広く分布する色素は生合成されるルートによって、三つのグループに分類できる。一つはカロテノイド(前節で述べたテルペノイドに属する化合物群でカロテン、キサントフィルなど植物だけではなく、動物、微生物などにも広く分布する色素群)、もう一つはフラボノイド(フラボン、フラボノン、フラバン、イソフラボン、アントシアニジン、カルコンなどを含むC6-C3-C6ユニットを持つ植物に分布する色素群)、そしていま一つは、分布は狭く砂糖ダイコン、ヨウシュヤマゴボウ、ホウレンソウ、ウチワサボテンなどに含まれるベタレインと呼ばれる3種の色素群である。緑色の花もないことはないのだから、この3種にクロロフィルを加えるべきかもしれないが、クロロフィルは一般的には花の色素として認識されていない。クロロフィルについては3種の色素の話が終わったところで少し触れることにする。そこで、主要な3種の色素について少し述べておきたい。


カロテノイド


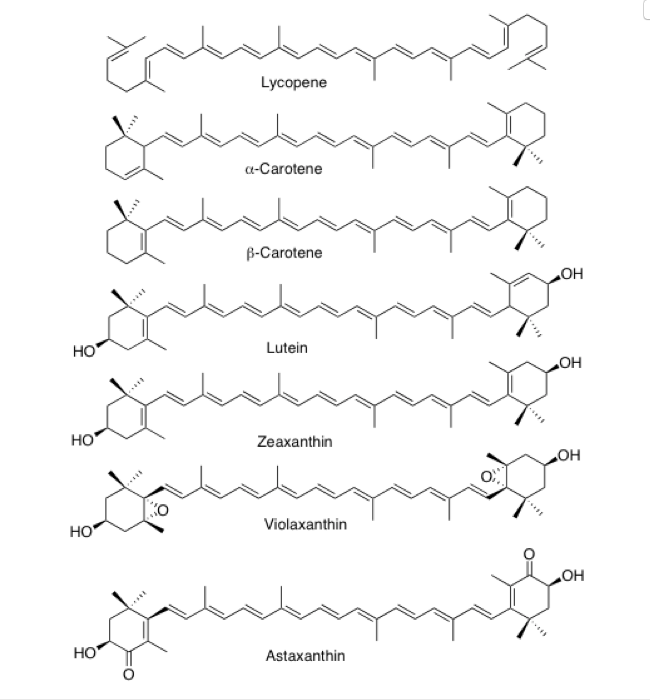
 カロテノイド(carotenoid)、語源はcarrot(ニンジン)であり、carrotの語源はギリシャ語のkaroton、ラテン語のcarotaに由来するそうだ。カロテノイドは前節で述べたように、多数の共役した二重結合を含む化合物群で、テルペノイドの一群として分類される。主として赤色、橙色、黄色を示す色素群であり、ガーベラ、キク、マリーゴールド、キンセンカ、ガザニアなどの黄色から橙色の花の色素である。自然界では、高等植物だけでなく蘚苔類、藻類、あるいは酵母、バクテリアなども生合成能力を持ち、地球上では年間に約1億トンが生産されているという。花の色素として機能するカロテノイドには、α-カロテン、β-カロテン、リコペンなどを含むC40カロテン類と、それらの酸素添加反応生成物であるルテイン、ゼアキサンチン、ビオラキサンチンなどを含むC40キサントフィル類などが存在する。

カロテノイドの種類

  実に味気ない叙述である。間違ってはいないかもしれないが、面白くも何ともない。書いた本人がそう思うのだから、読む方はもっと退屈に感じ、もう睡魔に懐柔されているのではと勘ぐりたくなる程である。実はこの先に、45や50個の炭素原子を含むカロテノイドがあるとか、キノコにも含まれる、サケ・マスの肉の色あるいはエビ・カニを煮たときに赤くなる甲羅の色の成分もアスタキサンチンというカロテノイドのせいだ、フラミンゴの婚姻色はβカロテンが原因だなどと並べることは可能だが、それではこの文章は睡眠薬にしかならないだろう。

 さりとて、現世の健康第一主義、健康のためなら命もいらぬと言う風潮に靡いて、β-カロテンは健康によい、ビタミンAの原料になる、ルテインは目によい、リコペンはに抗酸化作用があるなどと、サプリメント業界に媚びを売るつもりもさらさらない。実はここからどう話をつなごうかと、書きながら考えている。面接で、思わぬ質問を受けたとき、「思いがけない質問で少し困っています。とはいえ、その問題には考えるべきいくつかの側面があると思います。その中で・・・・・」などと意味のない言葉を連ねながら、答えるべきことを必死に考えている状態と似ているようだ。

 先に述べたようにアブシジン酸生合成の中間に位置するこの β-カロテンは、以前はアンテナ色素として植物の効率的な光の吸収と伝達で働くのが主な機能と考えられていた。しかし近年では、光合成に伴って生成する活性酸素の生成を防ぐとともに、生成してしまった有害な活性酸素から植物自身を保護する作用のほうがより重要である事が明らかになってきた。
 
 そこで光合成だが、光合成反応は明反応と暗反応に大別される。と心置きなく書けたのは20世紀の終わり頃までだった。いまはどう呼ぶか、明反応の部分は光化学系とこれに連なる電子伝達系、暗反応の部分は炭酸固定・炭酸同化あるいは炭素固定・炭素同化などが使われているようだ。理由は簡単で、明反応の中に光が関与しない部分があるから光反応は適当ではない、暗反応においては、暗いところでは明反応からのエネルギーと還元力の供給がないだけでなく、暗反応の主要な部分を担うカルビンベンソン回路に含まれる酵素の一部が光による制御を受けており、暗反応は暗所では作動しない。従って、暗反応という名称は適切でないということであるようだ。いやいや、ややこしいことになってきた。電子伝達系には、光合成と関係なく機能する場合があるから不適切だ、炭素固定にもTCA回路を逆向きに回す還元的カルボン酸回路やメタン発酵なども含むから不適切だなどと続けていったら、何処まで分ければいいのだろうか。

 炭素固定に関与する酵素群が触媒するいわゆる暗反応は、素直な化学反応の連なりとして有機化学的に理解するのはさほど難しくない。ところが光化学反応は、私にとってと限定した方が適切かもしれないが非常に難しい。この反応において、電子の伝達を定量的に記述した本はほとんどないのではなかろうか。これは植物生理学といういくぶん生物学よりの学問を専攻した方々が、電子伝達を電子論的に記述することに不慣れであったこと、電子伝達系で働く化合物群の分子量がかなり大きく、図として描くことが困難であること、さらにこれら化合物群が共役した多数の二重結合を持つため反応に関与する電子をどこに描けばいいのか判断しにくい、などに起因していると思われる。

 さらに、明反応における電子の励起・伝達の部分は、いわゆる有機電子論の域を超えて量子化学の領域にある。電子が何処にあるかだけではなく、電子のスピンをも考慮して捉えないといけない。此処にいたって、筆者の理解は概念的なものになってしまう。一重項酸素と三重項酸素の区別はつくが、励起一重項クロロフィルと三重項クロロフィルの違いをどう描くかとなると、??である。HOMOとLUMOの世界である。その程度の理解で以下の文を書くため、間違いがあるかもしれないし、表現に不適切な部分があるかもしれないことをお断りしておく。(教育的指導をしていただければ、なお有り難い)

 さて、シアノバクテリアだけでなく全ての植物では、光合成中心にあるクロロフィルは光エネルギーを吸収して励起状態となった後、励起された電子を放出する。正常であれば、この励起された電子は電子伝達系を流れながら、ATPの生産あるいはNADPH++H+の生産に用いられる。と安易に書いてしまったが、これでは正しくないか。光化学系Ⅰと光化学系Ⅱに分けて考えないといけない。ここは後で書き直すとして、一部の励起一重項クロロフィルは三重項クロロフィルと呼ばれる活性化された状態になる。この三重項クロロフィルは三重項酸素と衝突すると、電子とエネルギーの交換を起こし、クロロフィルが基底状態に戻ると同時に、三重項酸素が有害な一重項酸素に遷移する。β-カロテンは、この三重項クロロフィルのほとんどを元のクロロフィルに戻すと同時に、生成した一重項酸素とも反応して三重項状態の酸素に戻す役割を果たしている。β−カロテンが受け取ったエネルギーは熱あるいは燐光として廃棄される。あれ、私は何を書いているのだろうか.論旨と関係のないことを書いているようだが、普段から良い光合成関連の本がないという不満が噴き出したようだ。

 少し本論に近づこう。植物とは、10億年ほど前に真核細胞の一種がシアノバクテリアと共生することで生じた新たな生物である。そして葉緑体(クロロプラスト)は、このとき取り込まれたシアノバクテリアの末裔である。ところでこのシアノバクテリアが酸素発生型光合成能力を獲得したのは35億年ほどまえであり、その光合成中心にはすでにβ-カロテンが存在したのは間違いない。(この年代推定も必ずしも正しいというわけではない。シアノバクテリアの出現時期に関しては、27億年前、32億年前、35億年前、37億年前と、いろいろな説があり確定しているわけではない。ただ、報告が新しくなるにつれて、より古い時代へと移行しているような感はある。35億年の値を採用する)この事実とβ-カロテンの生合成に酸素は不要であることを考え合わせると、地球上でのβ-カロテンの歴史が35億年以上になることは自明であろう。

 つまりβ-カロチンは、35億年ほど前に始まったシアノバクテリアによる酸素発生型の光合成反応において、三重項クロロフィルを消去するとともに、残った三重項クロロフィルから生成してくる一重項酸素を、比較的安定な三重項酸素に変換し続けてきたと言える。この2つの役割を果たす際に、β-カロテンはエネルギーを受け取って三重項状態に励起されるのだが、受け取ったエネルギーは熱あるいは燐光として捨てられるためβ-カロテン分子自体に化学変化は起こらない。ところが、20億年ほど前に出現した酸素添加酵素(オキシゲナーゼ) が βカロテンを基質として認識したために、β-カロテンはクリプトキサンチン、ゼアキサンチンを通ってキサントフィルと呼ばれる化合物群へと酸化されることになった。(更にだが、最初に出現したシアノバクテリアが持っていたRubiscoにオキシゲナーゼ活性があったかどうかの問題である。もし持っていたとすれば、オキシゲナーゼのレゾンデートルも書き換えられるかもしれない。)

 ここにおいてβ-カロテンは、過剰なエネルギー廃棄の通路となるだけでなく、自らの分子中に酸素を取り込んで、酸素分子自体を消去する役割をも担うことになった。さて、β-カロテンからほんの1段階酸化が進んだに過ぎないクリプトキサンチンは、この視座から見ると最大に見積もっても20億年の歴史しかない。つまり、β-カロテンからクリプトキサンチンへの1段階の代謝の伸長に、少なくとも15億年という時間が必要であったことを示している。この後クリプトキサンチンは、さらに5段階の酸化を受けてアブシジン酸に導かれるわけだが、そう考えるとアブシジン酸が若い分子であることは自明のことであろう。

 シアノバクテリアは鉄硫黄型反応中心をもつ光化学系Ⅰとキノン型反応中心を持つ光化学系Ⅱを持つ。前者は緑色硫黄細菌に由来し、後者は緑色糸状菌あるいは紅色光合成細菌に由来する。緑色硫黄細菌のすべてがβ-カロテンまでの生合成系を持つことを考慮すれば、カロテノイド生合成系は35億年よりもかなり前にβ-カロテンまでの系が完成していたことを意味する。同時に、β-カロテンの段階で、15億年以上足踏みをしていたのである。アブシジン酸が若い分子であると言うことが、今後の話の中で大きな意味を持ってくるので、是非頭の隅に残しておいて欲しい。

 本論に戻る。次はフラボノイドである。フラボノイドとは黄色、橙色、青色までの広い色調を示すC6-C3-C6のユニットを持つ化合物群で、フラバノン、フラバン、フラボン、フラボノール、イソフラボン、アントシアニジン、カルコン、オーロンなどを含み、配糖体まで考慮すると7000種を超す化合物で構成される極めて多様な物質群である。

フラボノイドについて

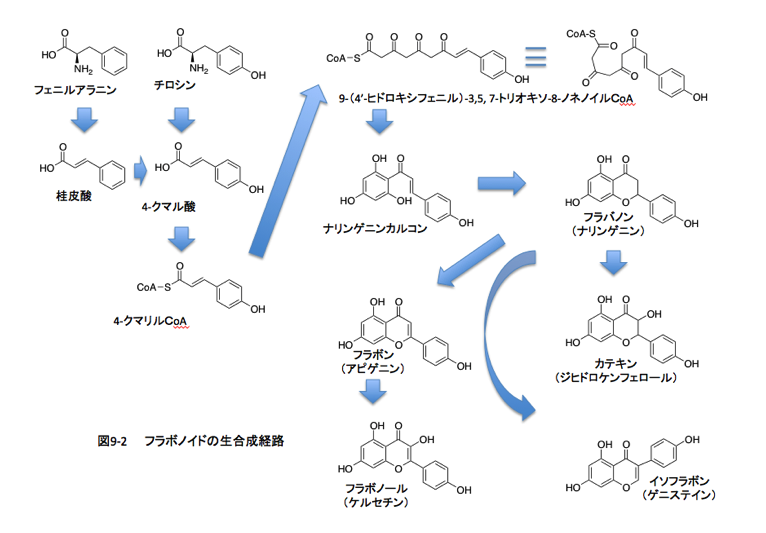
  次に簡略化したフラボノイドの生合成系の図を示す。ただ、この図が全てを網羅してないことに注意して欲しい。桂皮酸からシンナモイルCoAを通ってクマロイルCoAになる経路を省いているし、コーヒー酸からの流れも省いている。ダイゼイン生合成系も省いている。何故そんなに省くのかって?話の大筋に殆ど影響がないと考えたからである。カーネーション、キク、バラ、ビオラなどの花色の成分となっているとともに、ほとんど色のないフラボンやフラボノールが白い花の花弁に存在している。ではなぜ植物はフラボノイドを作るのか。またおなじみの疑問だが、答えは少し待って欲しい。フラボノイドの生合成を含めた少し詳しい話は後回しにして、まず常識的な予備知識を提供しよう。(ご存じの方は、ごめんなさい。)

フラボノイドの簡単な生合成系


 フラボノイドは太陽光に含まれている有害な紫外線から植物を守るといわれている。太陽の表面温度は6,000℃、強烈な紫外線を周囲に空間に照射しているわけだが、先ほど述べたように6億年ほど前の酸素濃度の急上昇に伴うオゾン層の成立によって、この紫外線の地表への到達量が激減した。これで生物の、上陸への準備が整ったといえる。しかし、UV-Cと呼ばれる短波長のエネルギーの高い紫外線はオゾン層でほぼ完全に遮られるにしても、UV-Bと呼ばれる280-315 nmの紫外線の約0.5%と、UV-Aと呼ばれる315-380 nmの紫外線の5%あまりは、地表まで透過してくる。UV-BはDNAに光反応を誘発し隣接するピリミジン塩基間で2量体の形成を引き起こすし、UV-Aはタンパク質の変性を誘発する。従って、オゾン層が成立したとはいえ、生物は上陸に際してこの紫外線への防御機構を持つ必要があった。

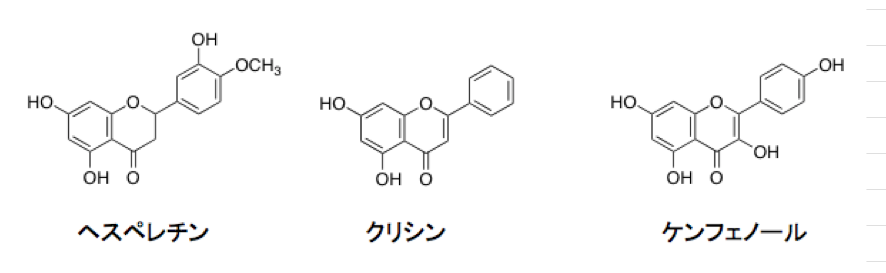
 植物は葉の表皮細胞で紫外線をよく吸収するフラボノイド(特にUV-A, UV-Bをよく吸収するフラボン、フラボノ―ル)を生合成する。そして確かに、フラボノイド類は紫外線障害から植物体を守っているようにみえる。フラボノイドを合成できない変異種は、紫外線に弱く太陽光の下では生育が抑えられることも知られている。色のないフラボノイド、例えばヘスペレチン、クリシン、ケンフェノールなど可視部に吸収を持たない化合物群でも、有害な紫外部に強い吸収帯を持ち、紫外線に対する防御に役立っているのは間違いないであろう。

 透明な花がある。サンカヨウ(山荷葉)というメギ科の多年草で本州中部以北に分布する。白い花だが水に濡れると花弁が透明になる。それは我々が見た場合であって、UV域では透明では無いと考えているのだが、北日本のどなたか、透明になった花弁のUV吸収スペクトルを取ってはいただけないだろうか。

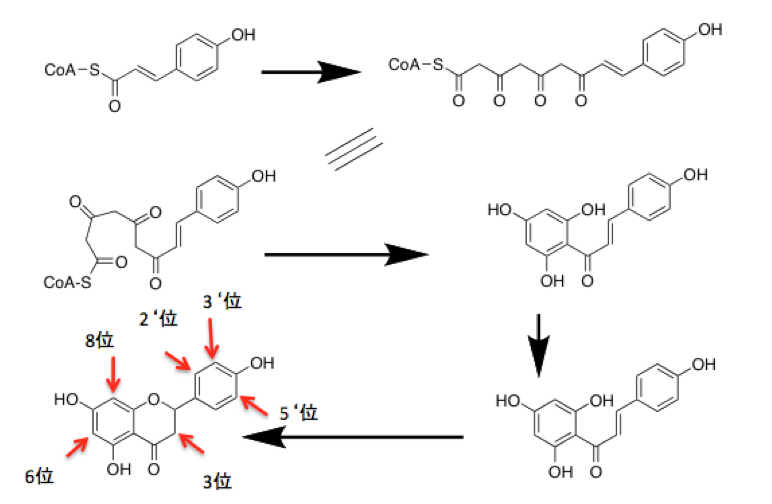
 またもや余談だが、フラボノイドの基本となる骨格上にはいくつかの水酸基が存在する。これらの水酸基の中で5位、7位の水酸基は、ポリケチド鎖が閉環、芳香化するときにケトーエノール互変異性体のエノール体として現れたもので、酸素分子が関与する酸化生産物ではない。同様に、4‘位の水酸基はアミノ酸であるチロシンの水酸基に由来しており、オキシゲナーゼが関与する水酸基ではない。

フラボノイドの水酸基の起源による分類

  従って、4’, 5, 7-ヒドロキシフラボン(通称: ナリンゲニン)は、嫌気的に生産可能な代謝物である。ところが、自然界には、2‘位、3‘位、5’位あるいは3位、6位、8位などに水酸基を持つフラボノイドが存在する。これらの水酸基は、先に述べた水酸基とは異なり分子状酸素の存在下にオキシゲナーゼの作用によって導入された水酸基である。フラボノイド分子から水酸基を除く酵素の報告はないことを考えると、フラボノイド分子を酸化程度に従って並べれば、それはフラボノイド分子を進化の順序に従って並べたものになることを意味している。

 サントリー(株)が作出した青いバラ(私には赤紫色にしか思えない)は、パンジーの持つ3’位と5’位に酸化的に水酸基を導入するフラボノイド3′,5′-ヒドロキシラーゼ遺伝子をバラに入れ、バラ花弁でデルフィニジンの生合成を可能にすることで成功した。これは、酸素を消去する代謝過程を一つ付け加えたことを意味する。従って、この青いバラは、元のバラに比べ酸素に対する抵抗性がちょっぴり上がっているに違いない。

 ベタレイン色素


 ベタレイン系色素は植物での分布は狭く、主とし、アントシアニンを生合成できないナデシコ目植物に分布する。我々になじみ深いのは、マツバボタン、ケイトウ、オシロイバナ、それからホウレンソウ、サボテン、ブーゲンビリア、変わったところでは菌類に属するベニテングタケの真っ赤な色の成分などである。

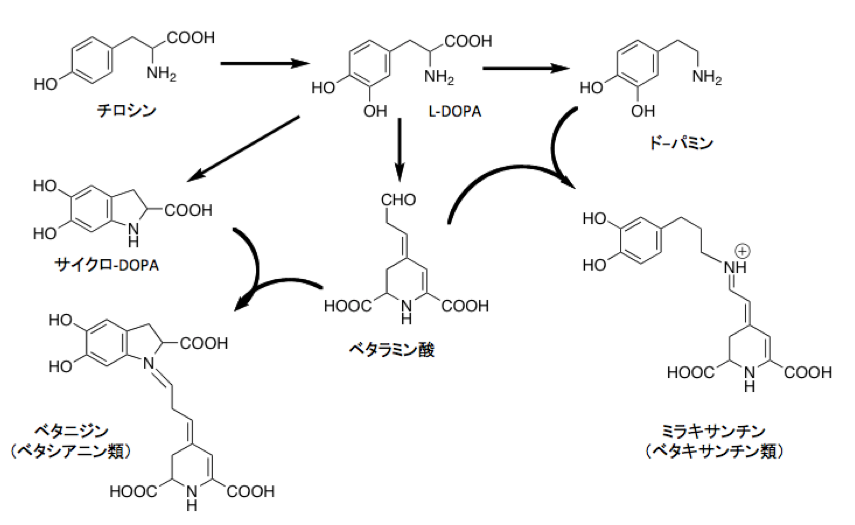
ベタレイン系色素の生合成系

 上図に示すようにこのベタレイン系色素は、植物体内でチロシンから生合成される。まずチロシンにチロシナーゼと呼ばれる水酸化酵素が働きL-DOPAとなった後、4,5-DOPA dioxygenase extradiolの作用を受けてベタラミン酸が生成する。このベタラミン酸がドーパミンから誘導されるcyclo-DOPA類と反応して赤から紫の色調を持つベタシアニン類が生成する。一方、ベタラミン酸がプロリンのようなアミノ酸あるいは生体アミン類と反応すると、黄色からオレンジ色の色調を持つベタキサンチン類が生成する。ベタシアニン、ベタキサンチン類ともに、ベタラミン酸のアルデヒド基がベタラミン酸アミノ基あるいはイミノ基と縮合反応を起こして、共役によって安定化されているとはいえ酸化されやすいシッフ塩基あるいはイミニウムカチオン構造を持っている。

 このベタレイン系色素、人の代謝と比較すると興味深い。人において、チロシンから生成するL-DOPA、L-DOPAの脱炭酸で生成するドーパミンは精神状態を興奮側へ導く化合物群で、L-DOPAはパーキンソン氏病の治療薬でもある。ドーパミンからはノルアドレナリン、アドレナリンの生合成系がつながり、交感神経を興奮させるホルモン類の原料となっている。この系統の化合物を少し修飾してやると覚醒剤として働くようになる。同時にドーパの酸化で生成するドーパキノンも非常に反応性が高く、人のメラノサイト細胞の中でドーパクロム、インドールキノンへと非酵素的に変化した後、酸化重合を繰り返して真性メラニンと成り、人の皮膚の色素となる。色の黒い人はここの代謝系に多くの物質が流れていることを意味するだろう。そういえば、色の黒い人に鬱ッポイ人は少ないように感じている。とはいえ、ナデシコ目植物の細胞内で、人の精神状態を左右し、皮膚の色を決めるような反応が動いているとはなかなか面白い。

 さて、2017年に日本農芸化学会から出版された化学と生物に、「植物色素ベタレイン—分布,生合成および生理機能ー謎に包まれた多機能性植物色素」と題する紹介記事があった。近年までに得られた知見がよくまとめられており、読みやすい記事だとは思うものの、2つの点で物足りなさを感じる。1つは植物がなぜベタレイン系色素を作るのかという疑問を明確に意識することなく、創られた後で発現したベタレインの生理活性を基礎としてその存在意義が議論されているという点にある。ベタレインの持つ生理活性が、その生合成能を獲得した植物において有効に働いた事を否定するつもりはないが、そのことがベタレイン創製の理由にはならない。時間的な経緯を考えれば、創られることが先行し生理活性の獲得あるいは発現はその後に起こったことである。

 いま一つの物足りなさは、著者の意識がチロシンを出発物質とし最終産物をベタレイン系色素とするベタレイン生合成系という常識に拘束され、その中でベタレインが活性酸素の毒性からの防御、花粉媒介者誘引のための視覚的シグナル、環境適応にかかわる生理学的な機能を議論している点にある。チロシンを出発物質とし最終産物をベタレイン系色素とするベタレイン生合成系という概念は、代謝の流れの中からベタレイン類に興味を持つ研究者達の極めて恣意的な分節に由来しているに過ぎず、植物の代謝系をそのように区切る必然性はない。例えばだが、イソペンテニルピロリン酸を出発物質とし、フィトエンまでをフィトエン生合成系とする、β-カロテンまでをβ-カロテン生合成系とする、ゼアキサンチンやビオラキサンチンまでをそれぞれの生合成系とする、アブシジン酸までをアブシジン酸生合成系とする分節は、研究者がどの化合物に興味を持っているかに支配されている。アブシジン酸の生合成系はイソペンテニルピロリン酸を出発物質とするには長すぎるとして、これをβ-カロテンまで繰り下げている場合もある。

ここから本論


 花色を決めている色素類についての簡単な説明は終わった。そこで、本論に戻り花の色についての議論を始めよう。花の色が様々であるのは、「花に種々の色彩を持つ色素が存在するからだ」と一般には考えられている。しかし色素の存在は十分条件であり、色素があるからといってその色に見えるものではない。まず必要条件として、花の部分に葉緑素が存在しないことが求められる。(極少数の淡緑色の花も、葉緑素量が減っているものとして捉える) 通常、植物の緑色の部分にもいろいろな色素が存在しているが、葉緑素の存在量が際だって多いため緑色に見えている。例外的には、花色色素の存在しない白い花もあれば(白色色素があるという考え方も成立する)、水に濡れると花弁が透明になってしまう花もある。(http://nyanko.iza.ne.jp/blog/entry/42976/ 参照)つまり、植物体から葉緑素を除いた時点で、残りの色素が見えてくるのである。秋の紅葉は、ロマンチックなものでもメランコリックなものでもなく、葉緑素が分解された条件下に、フラボノイド類の分解産物であるアントシアン類の色が見えてきたすぎない。

 さて花に存在する色素は、特定の波長の太陽光を吸収しながら、それ以外の波長の光を反射する。我々は反射された光を見ているわけである。赤い花に含まれる色素は、緑色、青色の光を吸収し、赤色光を反射する。反射された赤色光を見て、我々は赤い花だと感じるというわけである。植物の葉っぱが緑であることから、植物は光合成に緑の光を使っているように勘違いしている学生をよく見かけたが、植物は緑の光は利用せず、反射したり透過させたりして捨てているに過ぎない。光合成に使われる光は赤色の光と青色の光である。赤い光の下では、植物の葉っぱは真っ黒である。されば、美しいかどうかは問わないにしても花はなぜ色素を持つかという問いの裏側には、花はなぜ葉緑体を失ったのかという問いが存在すると考えた。とすれば、花はなぜ葉緑体を失ったのかという問いにまず答えなければならないだろう。

 さて、花の定義を学問的に厳密に行おうとすると実に難しい。生殖に関連する器官は、いわゆる高等植物だけではなく蘚類、苔類にも存在する。まず、花という概念に何を含ませるかという定義以前の問題がある。常識的な範囲で考えても、被子植物の生殖器官とするのか、被子植物と裸子植物を含めた種子植物の生殖器官とするのか、あるいはシダ植物の胞子茎まで含めるのかによって、定義は大きく様相を変える。特殊な進化をした例外的なものを全て包含させようとすると、却っておかしくなってしまう。

 私論だが大筋で間違わない程度の定義をするとすれば、茎の先端に雄しべ(葯と花糸)や雌しべ(柱頭、花柱、子房、胚珠)のような特殊化された器官を持ち、花弁や萼で包まれた種子植物の生殖器官とでもなるのだろうか。では、花の機能はと問われれば、生殖に伴い次世代を担う種子あるいは胞子の生産と考えて良いであろう。

 この機能を基本に考えれば、蘚類や苔類の胞子体も同じ機能を持つ器官のカテゴリーに含めて良いだろう。面白いことに、蘚類や苔類の胞子体も多くの場合葉緑体を失っている場合が多い。誰もが知っているスギナの胞子体−ツクシに葉緑素はない。ゼニゴケは雌雄異株でそれぞれ葉緑体含量の少ない雌器托と雄器托を形成するが、その雌器托下に形成される胞子体は黄色であり葉緑素は含まれない。スギゴケも種類が多いとはいえ、胞子体の緑色はうすく褐色系統の物が多い。そうすると、花には何故葉緑体が存在しないかと言うという問いは、植物の生殖に関する器官には何故葉緑体が含まれないかと言う問いに置き換えられそうだ。

 もちろん、この議論の進め方が幾分強引だとの批判はあると思う。だが議論を進めるに際して、無視すべき少数の例外と無視してはいけない少数の例外の峻別は避けて通れない。ではその峻別の正しさはどうすれば分かるか。歴史に委ねるしかないであろう。峻別という言葉を使うにしても、峻別するのは人である。人の行う峻別という営為は、通常主観による恣意性の発現に過ぎない。こうした諦観を持って、私は少数の緑色の花の存在をしばらく無視することにする。この部分を書いたのは平成13年の7月頃である。いま書くとすれば、排除と書いたかも知れない。流行りですから。

 植物は細胞内に葉緑体を持つ。この酸素を発生する細胞小器官の存在故に、光合成を行っている植物細胞内の酸素濃度は非常に高い。また植物が光合成を行うに際して、受光したすべての光エネルギーが糖生産に使われるわけではない。強光下においては70%を超える光エネルギーが何らかの形で捨てられている。しかし、このエネルギー廃棄系から漏れ出すエネルギーが存在する。先にも述べたが、光化学系Ⅱにおいては励起されたクロロフィルが三重項酸素分子を一重項酸素分子へと励起する。この一重項酸素分子は反応性が高く、脂質の過酸化などを通して膜の破壊を引き起こす。光化学系Ⅰにおいては、励起クロロフィルが電荷分離を起こした後、電子伝達系に送られるはずの電子が酸素分子へと渡されると活性酸素の一種であるスーパーオキシドアニオンラジカルが、活性酸素防御系がうまく働いていない場合にはより反応性の高いヒドロキシラジカルも生成する。

 一重項酸素、スーパーオキシドアニオンラジカルにSOD(スーパーオキシドディスムターゼ)と呼ばれる不均化酵素が働いて生成する過酸化水素、そしてヒドロキシラジカルなどは活性酸素と総称され、膜を破壊しタンパク質を変性させDNAを酸化する能力を持ち生命活動に悪影響を与える。これらが、ヒトを含む全ての生物の経年劣化の主要な原因であることが、近年よく知られるようになってきた。

 酸素発生型光合成を行う植物において、高度に発達した活性酸素消去系が存在していることが求められる。つまり、植物細胞が葉緑体という光合成行う細胞小器官を持つと言うことは、CO2を固定して糖を生産するというメリットとがあると同時に、細胞が光を受けた時に毒性の高い活性酸素の生成が起こるというデメリットとの微妙な平衡の上に成立していると考えるべきである。こうした観点から見れば、減数分裂を伴う卵細胞と精細胞の作成と受精という生物にとって最も変異に弱い精妙な段階を遂行する場としての生殖細胞が、葉緑体を失うことは明らかに有利なことであったと思われる。

 結果論ではあるが、葉緑体を失った生殖細胞を持つ植物の方が、有害な突然変異の影響を受けることなく子孫を残し続けてきたと理解して良いだろう。こう考えることによって、苔類や蘚類の胞子体、種子植物の花と呼ばれる器官が、葉緑体を失っている場合が多いことを体系的に説明できるのではないか。

 さて、アメリカの心理学者ドン・クリフトンが発表した人間関係の理論に“バケツ理論”というのがあるそうだ。バケツの穴理論ではない。「人は皆、大きな心のバケツをかかえている」というものだ、このバケツに人からの称賛、肯定、認知、関心の水をためれば、その人は幸せになる。人から受ける非難、批評、悪口、叱責、無視等の否定はバケツに穴を開けるという。そして、バケツの中の水を失うと人は不幸になるという理論である。何となく異常に馬鹿馬鹿しく感じて殆どフォローしていないため、理論の正否についてというよりこれが理論であるかどうかさえ判断できない。水の入ったバケツなんて、持たされ立たされた記憶があるのみである。その場合、水は少しでも少ない方が好ましい。

 もう一つ「バケツ理論」と称せられるモノがある。カール・ポパーが科学論における帰納法を批判して出してきた概念である。簡単に言えば、情報の海の中に穴(感覚器官)の空いたバケツ(ヒト)がある。この穴を通して流れ込んだ情報が知識となるとする帰納法に対し、ポパーは主観としての問題意識を欠いた観察は存在せず、主観による問題意識を通して認識されたものが「開かれた」批判的討議を通して客観的な知識へと成長すると主張した。そして帰納法をバケツ理論と名付けて否定すると同時に、主観としての問題意識をサーチライトに例えた「サーチライト論」を提唱した。こちらのバケツなら、理解可能である。

 何で急にバケツかと不審に思われるかもしれないが、実は私も「バケツの穴理論」というモノを考えていた。ポパーが言うところのバケツはヒトである。バケツの穴とは感覚器官である。そして、このバケツが情報の海にある。ここまでは、私の考えとよく似ているが、ここからが違う。私の言うバケツの穴はきわめて小さい。そのため、流入する情報は穴の大きさで制限され、外界にある殆どの情報は認識できないという理論である。

 少し具体的に述べるとすれば、我々が聞くことのできる音は個人差があるとはいえ、20Hzから20,000Hz程度である。もはや私には、12,000Hzあたりからのモスキート音は聞こえない。従って、コンビニの前に私が座ったとして、モスキート音による嫌がらせは成立しないだろう。20Hz以下の音および12,000Hz以上の音に対して、私はツンボであると言うことだ。いかに豊穣な世界がそこにあるにしても、私にとっては存在しない。

 同じく、我々が認識できる電磁波の範囲は、380 nmから750 nmの範囲である。380 nmより波長の短い電磁波は、紫外線、X線、ガンマ線と分類されており、750 nmより長波長の電磁波は赤外線、サブミリ波、ミリ波、センチ波、極超短波、超短波、短波、中波、長波、極超長波と分類されている。勿論、これより短い波長の電磁波もあれば、長い波長の電磁波もあるだろう。ともあれ、上記の分類も恣意的であり、出典によって異なる分類が存在するとはいえ、γ線の周波数は1020~1023Hz(波長は10-12~10-14 m)、超超長波の周波数は3 Hz以下(波長は108 m)程度であろう。この範囲で我々が認識できるのは0.75 ×10⁻⁶ mから0.38×10⁻⁶ mというきわめて狭小な範囲に過ぎない。

 いま、この空間にはラジオ、テレビ、各種レーダーなどの電波が飛び交っている。電子レンジから漏れたマイクロ波も携帯電話から発信される極超短波も、それらの全てが、我々にとっては存在しない。(本当は、これらの電波は有害であるのかもしれないが) ここにおいて、赤外線健康炬燵のカバーに赤い繊維を貼り付け、ランプから出る赤色光を強調するという感覚詐欺的行為が成立する。されど、我々の視覚に対する信頼は盲信に近い。百聞は一見に如かずという諺通り、見ることが信じることの第一歩となっている。しかしながら、百見しても決して見えない広大な情報の海が存在しているのである。

 我々は、バケツにあいた小さな穴から漏れてくる情報のみをもとに、決して見えない外界を考えているに過ぎない。科学の進歩とは、我々が感知できない情報を、いろいろな機器を用いて可聴域の音と可視域の電磁波に変換することによって成し遂げられてきたとも言えるだろう。何が言いたいのか? 我々は、花を我々の目に見える色によって認識し、その色の意義を解釈してきた。この花は赤い、その花は黄色い、あの花は青いと。さらに、その色の組み合わせが、ヒトにとって心地よいモノであれば、これを綺麗、艶やか、華麗、可憐などと評するだけでなく、虫たちの行動にもその評価基準を押しつけ、説明してきたにすぎない。つまり、我々が感知できる可視域での情報のみに従って解釈してきたわけである。この判断態度は「バケツの穴から大海を覗く」が如き見識の狭さに立脚している。では、可視域での情報を越えた判断は可能か?

 可視域を越えた立場から虫たちの行動を解明した例としては、小原嘉朗氏らによるモンシロチョウの翅の紫外線反射率による雌雄の識別が良く知られている。花の紫外線写真から昆虫の行動を推測するような研究などは、結論の妥当性は別にしてそうした試みに当たると考えて良いだろう。では、ここで問題にしている花色についてどのような推論が可能か?

 フラボノイドに関してはその吸収する紫外線の波長がUV-Bの波長域に相当するため、植物を保護していると考えられているが、カロテノイド類やベタレイン系色素に関しては、それらの持つ可視域の強い吸収帯に幻惑されて、紫外域に関する議論は殆どなされていないようだ。例えばβ-カロテン、この化合物は450 nm付近にεmax (モル吸光係数) = 140,000という極めて強い吸収を持つ。このピークを記録用紙に納めるように測定の感度と濃度を調節すると、280 nm付近の極大吸収は小さなピークにしか見えない。しかしながら、実際のモル吸光係数は52,500という大きな値になる。さらに二つのピークが非常にブロードなピークであるため、300-350 nm付近の最も吸収の低い部分でもそのモル吸光係数は30,000近い値になり、この値はフラボノイドに匹敵する値である。これはβ-カロテンだけの話ではなくζ-カロテン、ニューロスポレン、リコペンなど植物に広範に分布するカロテノイドにおいても同様なことが言える。

 後述するが、フラボノイドはカロテノイドに比べ生合成の開始時期は大きく遅れる化合物群で、陸上植物にしか分布しない。オゾン層が成立した後、植物の上陸に際してフラボノイドが紫外線に対する防御物質として働いたとする説に異論はないが、紫外線が透過する水際までの水生植物の進出を可能にしたのはカロテノイドではなかったか。植物の上陸以前から、光合成のメリットと光毒性のデメリットの間で、植物のきわどい生存を支えてきたカロテノイドの存在意義に関しては、いかに強調してもしすぎることはないだろう。そして今ひとつの花色色素ベタレイン類においても、可視域での強い可視吸収帯とともに、320 nm前後にブロードな吸収帯が存在している。従って、この色素群も、多分ではあるが紫外線に対する防御物質としての機能を持つことは容易に推察できる。ただ、植物における分布が狭く生合成開始がかなり遅れる新しい化合物群であるため、植物の上陸時での貢献はないと言えるだろう。

 結論を書く。シアノバクテリアを内包した植物は酸素発生型の光合成能を獲得した。従って、光合成を行う細胞において酸素濃度は非常に高くなることは必然である。さらに、酸素の毒性は、光(紫外線を含む)の照射に伴い増大することも事実である。一方、生殖を担う細胞における酸素濃度の増大は、突然変異の可能性を高めるが故に可能な限り避けることが好ましい。従って、花という生殖を担保する器官において、葉緑体を失うという進化は非常に有益であったと考えて良い。そのような進化は、捨てられることなく、現生の植物にまで保持され続けたのであろう。さらに、葉緑体を失った器官において、太陽光照射に伴う紫外線傷害の軽減・除去ができれば、遺伝子変異の可能性をさらに低下させることが可能となる。つまり、葉緑体を失った生殖器官が、障害を起こす紫外線の波長域に吸収を持つカロテノイドやフラボノイドを維持し続けたことが極めて好ましいことは云うまでもあるまい。

 ヒトは紫外域での現象をみる能力を欠如していたが故に、UV吸収を持つ化合物群の可視域での振る舞いに幻惑されて、赤だ、黄色だ、青だという議論を続けてきたのであろう。結論は一つ、穴の開いたバケツであるヒトは、穴を通らない紫外線に気付くことなく、穴を通った可視域の光のみを見て、艶やかだだの奇麗だなどという的外れの議論をしていたのである。こうした人の行動に対して「バケツの穴理論」と揶揄したのである。

 「毎日、五月晴れの下、山畑での作業をしているのだが、湧き上がる入道雲のような照葉樹の新芽が実にきれいである。濃い緑ではなく、どの木の新芽も緑は薄い。ふと考えた。そういえば、植物の新芽、芽立ちの部分は葉緑体の少ないものが多いと。考えて見れば、植物の新芽、まだ生長を続けている柔らかい部分では、細胞分裂が盛んに行われている。こうした部分において活性酸素の濃度が高ければ、細胞機能に損傷を受けるだけでなく、突原変異の可能性も上がるに違いない。植物が、淡緑色の新芽のだけでなく、赤い新芽(アカメカシワやカエデの仲間など)、黄色い新芽(黄金マサキ)などを持つ理由について、先の結論を適用すれば、その理由がシンプル且つ合理的に説明できるではないか。」 「」で括った部分は5月に書いた。いまの季節には一寸合わない。しかし、こうした問題意識を持って周囲を見渡せば、剪定を追えた後に出てきた新芽も色が薄い。(書いた時期を反映しているので、3月に書いた訳ではない)

 以前に植物の色素について述べた。「人間、バケツの穴理論」のことである。我々が感知できる可視域の光にかまけて、紫外域の光を見落としてきたのではないかという内容であった。この議論の中で、煩瑣になることを恐れて素通りした項目がいくつか存在する。それについて少しだけ付け加えておきたい。

 紫外線写真というものがある。紫外線フィルターといえば、通常は紫外線をカットして写真の青みを抑え、可視域でのピントをシャープにするために使用する。これに対し、紫外線写真とは、可視光線と赤外線をシャットアウトして、反射してくる紫外光を使って写真を撮ったものである。当然の話として、可視光線で採った写真とは異なった画像がえられる。以下に二つのホームページのアドレスを示す。
1. http://www.fukuoka-edu.ac.jp/~fukuhara/uvir/hana_uv.html:このページには紫外線写真の取り方を含めいくつかの花の紫外線写真が紹介されている。
2. http://www.naturfotograf.com/UV_flowers_list.html :多種類の植物の花の可視光での写真、紫外線写真、蛍光写真、赤外線写真など、豊富な写真が見られる。

 紫外線部分を使って花の写真を撮ると、当然ながら可視光で撮ったものと違う模様が現れることがある。この現象は、植物の花の部分におけるUV 吸収を持つ物質あるいはUVを反射する物質の分布を反映するものである。私は先に述べたように、花における葉緑素の消失と、花色色素であるカロテノイド、フラボノイドそしてベタレインの存在を、UV光、可視光を含めた光傷害(直接的な核酸やタンパク質に対する傷害と光照射に伴い発生する活性酸素傷害)からの防御の観点から好ましかったであろうと考えている。もう少し正確に言えば、「葉緑素を持たず、かつ有害な紫外部と可視部で光を吸収するカロテノイド、フラボノイドそしてベタレインを含む花を持つ植物のほうが、有害な突然変異が少なかったであろう」と考えている。

 一方、この模様を虫や鳥に蜜のありかを教える印だとして解釈する考え方がある。蜜標(Nectar guide)という概念をもって、虫や鳥が紫外部で見ると黒く見える部分に導かれると説くのだが、余りにも筋の悪い仮説のようだ。花の中心に黒く写る部分があると、それは蜜のありかを示すシグナルであると説明し、アルストロメリアやツツジのように花弁上に黒い部分があると、それは昆虫が着地する位置を示す役割を持つという。そうした吸収パターンを持たない植物も多数存在する。多くの虫を集めるヤブカラシの花には特徴的なパターンは存在しない。花全体がUV吸収を持つ花もあれば、UVを反射する花もある。この辺りの議論については、次の和文の文献を見て欲しい。
福原達人(2008a)植物形態学、紫外線透過フィルタで撮った花。
http://www.fukuoka-edu.ac.jp/~fukuhara/uvir/hana_uv.html
山岡景行、文系学生のための生物学教材の改良、IV:被子植物の蜜標、その2 蜜標の擬似紫外線力ラー画像、東洋大学紀要 自然科学篇 第53号 69-87(2009) http://id.nii.ac.jp/1060/00002546/
 山岡氏はその中で、「筆者の自宅がある千葉県柏市郊外ではホシホウジャクMacro-glossum pyrrhostictaが、オオマツヨイグサが開花する時間帯である日没前に花々を求めて庭を乱舞する。同種はこの時間帯にメドウセージSalvia gztaraniticaやチェリーセージS.microphylla、オオマツヨイグサに群がる。日没後を過ぎるとオオマツヨイグサを訪れる昆虫は、ブドウスズメAcosmeryx castaneaやオオマツヨイグサを食草とするベニスズメDeilephila elpenor lewisiiに交替する。黄昏時ならばいざ知らず、日没後で灰かに見えるだけのオオマツヨイグサに刻まれた蜜標紋様が役に立つとは考えにくい。

 ミツバチを使ったFrish達の鮮やかな実験の印象が強すぎて、訪花昆虫が全てRを見えずにUVを見ると考えがちであるが、これは問題でありUVだけに着目するのは危険である。」 
と書いている。論文中の「Rを見えずに」の部分は意味不明だが、「赤外あるいは可視域での光を見ずに」という意味だと解釈した。そう考えれば、彼の発言に同意できる。UV域での像だけでなく可視域での像も含めて議論すべきであるし、彼が述べているとおり誘引性を持つ、花の香気成分も当然考慮すべきであろう。私に云わせてもらえば、花のサイズも考えるべきである。西洋アブラナ(菜の花)の中心部分に紫外線写真で黒く写る部分があり、これが蜜標だと云われても納得できない。ミツバチと花のサイズはほぼ同じで、ハチが止まればその下に蜜腺がある。止まった状態で蜜標がなければ蜜腺にたどり着けないそんな馬鹿なミツバチなどいるはずがないだろう。

 さらに、植物は花以外の部分からでも蜜を分泌する。花外蜜腺と云われているもので、ソメイヨシノやアカメガシワ、カラスノエンドウ以外にも多くの植物に存在する。どう説明するのだろう。そうか、アリ植物という概念があった??
http://www.agr.kyushu-u.ac.jp/lab/ine/ueno/attract2.html
http://www.fukuoka-edu.ac.jp/~fukuhara/keitai/kagaimitsusen.html

 さて、世の中には擬似相関(Spurious relationship)と呼ばれる相関のない関係が存在する。2つの事象間に相関がないにもかかわらず、いかにも因果関係がありそうに見える場合を指す。「ガスストーブの使用時間が長くなると脳卒中患者が増える」とか、「朝食を規則正しく食べると成績がよくなる」「髪の毛の長い小学生は言語能力が高い」「アイスクリームの消費量が増えると水死者が増える」など、色々な例がある。

 多くのデータがあるとき、恣意的にある傾向を持つ例だけを抽出すれば、どんな結果でも導くことができるということだろう。科学を志すものとしては、決してやってはいけないことである。紫外線写真の解釈においても、肉眼で見えないものを初めて見つけたという喜びと興奮があったことは理解できるが、蜜標(Nectar guide)という概念を提案するについては、もう少し冷静にかつ理性的に考えるべきであったと思う。

 山岡氏も、あそこまで蜜標(Nectar guide)という現象に疑問を呈したのであれば、一歩進めてこの概念を否定しても良かったのではないか。紫外線吸収パターンに基づくNectar guide という概念の前に、ハチが食料である蜜と花粉を見つけるためにFlower guides を利用するという先行する概念があったとはいえ、検討した母集団の選択が余りにも不適切であろう。私は過激だから、Nectar guideを含む Flower guidesというアドホックな定義そのものを否定する。

 植物が蜜の分泌をはじめたのと、昆虫が蜜の利用をはじめたことを時系列で並べれば、前者が先行することは論を待たない。とすれば、なぜ植物は蜜を分泌するのかという問いにまず答えなければならない。殆どすべての植物が蜜を分泌するとすれば、蜜の分泌をしなければならない必然が植物側にあると考えるべきである。その分泌された蜜に対して、昆虫がどう絡んでくるかは、次の段階の問題である。植物は虫を呼び寄せるために蜜を分泌したのではなく、植物が蜜を分泌したから虫がよってきたのである。

 分からないものを分からないままにおいておくことに、たまらない不安感を感じる人がいるらしい。私にはその傾向はない。分からない事柄について記憶はするし考えることを止めはしないが、時には人智を越えたものだとして残しておくことが少しも苦痛ではない。考えるネタがあるということは幸せではないか。アリ植物という概念においても、Nectar guideの場合と同種の時間錯誤が起こっている。(https://bamboolab.yamasatoagr.com/wp/wp-admin/post.php?post=5269&action=edit参照のこと)

 近頃、植物が蜜を分泌する理由が分かってきたような気がしている。物理学における統一理論みたいな話になるが、植物における色々な現象を包括的に説明できそうである。この話は、章を改めて近いうちに論じることにする。 
 

カテゴリー: 歴史生物学, 花の色素に関する考察 | 花の色素に関する考察 はコメントを受け付けていません